сряда, 17 ноември 2010 г.

Методи за датиране, история

Кога е образувана Земята? Кога се появява животът на нея? Кога за първи път се появяват хората и останалите примати? Съвсем естествено, точни отговори на тези въпроси няма преди 60-те и 70-те години на миналия век, когато са открити методите за радиометрично датиране, които позволяват датирането на проби на милиони, милиарди години. Въпреки това, много учени в миналото са опитвали да определят възрастта на Земята и началото на живота.

В древни времена изследванията са се базирали основно върху преброяване на поколенията в свещените текстове. Например Манетон (ІV-ІІІ в. пр. н. е.), древноегипетски жрец и историк, прави списък с всички династии, фараони и богове, които са царували до това време. Според този списък Земята е на 38000 години. В началото на 17 в. пък ирландският  архиеп. Джеймс Ушер приема юдео-християнския Стар завет буквално и пресмятайки поколенията на библейските персонажи определя, че дата на началото на сътворението е 23 октомври 4004 г. пр. н. е. (преди около 6000 години).
James Ussher
  1581-1656

С бързото развитие в областта на европейската наука, предимно след 17 век, става все по-ясно, че Земята е на много повече от няколко хилади години. Някои учени отхвърлят теологичните методи и започват да търсят други, с помощта на които да определят възрастта на земята на базата на естествени, природни процеси. През 1691 г. британският астроном и математик Едмънд Халей изказва предположението, че ако водата в световните океани първоначално е била сладка, то може да се определи възрастта на Земята като се раздели общото количество сол в момента в океаните на добавяното всяка година количество от реките и потоците. Въпреки че Халей не разполага с всички необходими данни за подобно изчисление, той все пак пресмята, че Земята не е по-млада от 100 млн. години.
Edmond Halley
1656-1742 

През 1785 г. шотландският геолог Джеймс Хътън предполага, че различните геологични пластове принадлежат към различни времеви периоди, като наблюденията му показват, че по-дълбоко са разположени по-старите пластове. През 1799 г. Уилям Смит, британски инженер и геолог, доразвива тази идея като разделя седиментните скални пластове на 6 основни подразделения, базирайки се главно на фосилните данни, които се съдържат в тях:
  • Неозой - съвременни форми на живот.
  • Мезозой - междинни форми на живот.
  • Палеозой - древни форми на живот.
  • Протерозой - ранни форми на живот.
  • Археозой - начални форми на живот.
  • Азой - липсват форми на живот.
Тези основни подразделения, или ери, предложени от Уилям Смит стават основа на геологичната времева скала, която използваме и днес. Смит също така създава и първата подробна геоложка карта на Англия. Не случайно днес е считан за баща на геологията.
William Smith
1769-1839
В средата на 19 в. някои учени започват да определят времевите периоди, които стоят зад всяка промяна в животинските видове, чиито фосили са намерени в скалните проби на Смит. Тогава се е приемало погрешното схващане, че видовете еволюират на етапи, които са строго определени и могат да бъдат измерени. Английският геолог Чарлс Лайъл използва този подход през 1867 г., за да определи че животът съществува на Земята от около 240 млн. години. Това се случва 8 години след като Чарлс Дарвин публикува "Произход на видовете", където обяснява как естественият отбор може да доведе до образуването на нови видове.
Друг неточен метод за определяне възрастта на Земята е предложен от Уилям Томпсън (Лорд Келвин) през 1862 г. Базирайки се на законите на термодинамиката и изхождайки от предположението, че Земята в своето начало е била съставена от разтопени скали, той изчислява времето, което ще е нужно на повърхностните скални слоеве, за да се охладят до сегашна температура. В резултат заключава, че Земята е на повече от 400 млн. години.
Charles Lyell
1797-1875
Charles Darwin
1809-1882
William Thomson
1824-1907
Въпреки огромното значение за развитието на науката на тези и други научни методи, целящи да определят възрастта на Земята и живота, те си остават доста неточни. Днес ние знаем, че Земята е на приблизително 4,54 милиарда години, а живот има на нея от поне 3,5 милиарда години.

вторник, 16 ноември 2010 г.

Произход на перата.

Векове наред се е приемало, че перата са типични само за птиците. Днес знаем, че това не е вярно. През последните няколко години палеонтолозите откриха данни за наличие на оперение при различни видове динозаври. Кога перата се появяват за първи път и как еволюират? Учените продължават да търсят отговори на тези въпроси.

Провинция Ляонин е разположена в Североизточен Китай, на няколко дни път от Пекин. Известна е със своите ферми и фабрики, както и с едни от най-богатите фосилни находища в света. Фосилните находки от Ляонин предоставят едни от най-важните доказателства в подкрепа на теорията, че птиците и динозаврите са близкородствени, както и данни за произхода и еволюцията на перата.

Caudipteryx zoui
Както повечето сложни биологични структури, перата еволюират на етапи. Фосилните находки от Ляонин подкрепят тази идея. Някои от динозаврите, намерени в този регион, са притежавали прости пера (протопера), докато при други са открити много по-сложни такива, сходни по устройство с тези на днешните птици. Еволюцията на перата може да бъде проследена назад до около 150 милиона години.

Caudipteryx zoui - птицоподобен динозавър, с перушина, покриваща цялото тяло. Срещал се е в началото на креда. Пропорциите на тялото са сравними с тези на днешните нелетящи птици.  Перата при Caudipteryx са много подобни на тези при днешните птици. Те притежават централна осева част, с многобройни по-фини разклонения, оформящи типичната структура на перата. Въпреки наличието на пера, Caudipteryx не са можели да летят, тъй като предните им крайници са твърде къси. Което показва, че съвременният тип пера еволюират много преди способностите за летене.
Фосилна находка на Caudipteryx zoui.

Microraptor gui - птицоподобен динозавър, живял в началото на креда. Бил е един от най-разпространените от така наречените нептицеподобни динозаври в екосистемата си. Представен е от повече фосилни находки, отколкото който и да е друг дромеозавър - над 300. Оперението по предните и задните му крайници оформя четири аеродинамични повърхности - крила. Перата при Microraptor са идентични с тези на днешните птици. Учените не са единодушни по отношение на това дали тези динозаври са можели да летят. Повечето предполагат, че по-скоро са планирали между дърветата, подобно на летящите катерици.
Microraptor gui

Перата насъвременните птици се състоят от стотици тънки влакна, водещи начало от кух ствол, простиращ се по дължина. На повърхността на всяко влакно са разположени множество малки нишки с форма на кукички, чието предназначение е да държат влакната свързани. Тази сложна структура еволюира на етапи в продължение на милиони години:
  • Етап 1 - тънки и кухи нишки, появяващи се преди около 150 млн. години.
  • Етап 2 - снопчета от нишки, които донякъде напомнят пуховите пера.
  • Етап 3 - множество нишки, закрепени за централна ос.
  • Етап 4 - разклоняваща се централна ос, тези пера осигуряват аеродинамична повърхност, необходима при летенето.
 
Tyrannosaurus rex се е срещал в Северна Америка преди повече от 66 млн. години. Един малък представител на същото семейство е обитавал горите на Ляонин. Този дребен родственик на T. rex без съмнение е бил също свиреп хищник. Наречен е Dilong paradoxus. На местен език родовото име означава "императорски дракон". Външният вид на тези динозаври е сходен с този на T. rex. Притежавали са огромни челюсти с много малки предни зъби. Но този тиранозавър е притежавал и една изненадваща характеристика - тялото му е било покрито с протопера. Тези протопера са изследвани от екип палеонтолози от Китайската Академия на Науките и е установено, че са помагали на животните да регулират телесната си температура.
Dilong paradoxus
 
Dilong paradoxus е притежавал сравнително дълги предни крайници с по три пръста. Тиранозаврите са класифицирани като тероподи - двукраки, месоядни динозаври - а наличие на пера е установено при много видове тероподи, което навежда на мисълта, че са типични за групата като цяло.
 
Дали е възможно T. rex да е притежавал пера? Според много специалисти е възможно, особено в млада възраст. Много палеонтолози са на мнение, че перата се появяват първо в отговор на нуждата от терморегулация. И докато младите животни вероятно са притежавали фина покривка от протопера, възрастните не са се нуждаели от такава, за да съхранят телесната си температура. Големите топлокръвни животни - като днешните слонове, например - генерират вътрешна телесна топлина и не се нуждаят от изолационна покривка (косми или пера), за да я съхранят. Вероятно поради тази причина възрастните слонове нямат козина.
 
T. rex
Пера или пух? Летящите влечуги, наречени птерозаври, са само далечни родственици на динозаврите. Птерозаврите не са притежавали пера, но някои са били покрити с фини нишки, понякога определяни като пух. Възможно е първите етапи от еволюцията на перата да са представени при предшествениците на птерозаврите и динозаврите.
Jeholopterus ningchengensis
 
Sinosauropteryx prima е птицоподобен динозавър, чието тяло е било покрито с къси, фини и кухи нишки. Фосилните находки от Sinosauropteryx са първото доказателство, че и други животни освен птиците са притежавали пера, макар и много по-примтивни. Тези протопера вероятно са служили за регулиране на телесната температура.

Sinosauropteryx prima
 
Фосилните находки на друг динозавър - Sinornithosaurus - са забележителни с това, че отпечатъците от пера са изключително ясни. Както изглежда  Sinornithosaurus са притежавали три типа пера - прости космоподобни нишки, пухоподобни снопчета и съвременен тип пера. Филогенетичните анализи определят Sinornithosaurus като едни от най-примитивните сред дромеозаврите.  Но някои техни характеристики - като устройство на черепа и раменната кост - са сходни с тези на Archaeopteryx. Тези факти показват, че ранните дромеозаври са били по-птицеподобни, отколкото по-късните такива, което опровергава един от аргументите на критикуващите теорията, че птиците произлизат от динозаврите.

Sinornithosaurus
 
Продължаващите открития на пернати динозаври в Ляонин носят важна информация за произхода на перата и полета, както и еволюцията на птиците. Тези находки са забележителни не само със своето изобилие и видово разнообразие, но и с това, че са изключително добре съхранени. Деликатни характеристики като текстура на кожата и пера са ясно видими при повечето от екземплярите. Бъдещите изследвания на тези находки с помощта на морфологични, екологични, генетични и биохимични методи ще допринесат за по-детайлното изясняване на филогенетичните им взаимоотношения със съвременните птици, както и за произхода, и еволюцията на перата.

понеделник, 8 ноември 2010 г.

Идеята за еволюция в древността.

And in the ages after monsters died,
Perforce there perished many a stock, unable
By propagation to forge a progeny.
For whatsoever creatures thou beholdest
Breathing the breath of life, the same have been
Even from their earliest age preserved alive
By cunning, or by valour, or at least
By speed of foot or wing. And many a stock
Remaineth yet, because of use to man . . .

Лукреций, "За природата на нещата", книга V.


Дори във времената на оскъдни научни познания, хората са имали подробна представа за живите организми около тях. От тях често е зависел и животът им. Когато тези знания са систематични и на тяхна основа могат да бъдат правени заключения и предвиждания относно заобикалящия свят, можем да говорим за научни традиции. Такива традиции са притежавали древните египтяни и вавилонци. Египтяните, например, развиват научните традиции в медицината, базирани на внимателни наблюдения. Гърците полагат основите в развитието на научния мироглед, в който с помощта на естествени, не магически обяснения, се добива представа за процесите и явленията в природата. Най-ранните древногръцки философи живеят и работят не в самата Гърция, а в една от нейните колонии - Йония (в днешна Турция). Географското положение на Йония е било подходящо не само за развитие и процъфтяване на търговията, но и за разпространяване на идеи. По този начин гръцките идеи повлияват научните познания и философия в Близкия Изток, Египет и дори Индия през различни периоди от историята. По-късно древноримски мислители продължават тази традиция, въпреки че техните научни идеи, не са така оригинални.

Не е възможно да се обхване всичко от широкия спектър и дългата история на научната мисъл в древния свят. Ще покажем само някои течения сред древните мислители, които по-късно са определящи за развитието на еволюционната биология.

Йонийска философска школа.

Историята на еволюционната теория започва с йонийския философ Анаксимандър (611 - 546 пр. н. е.). Много малко е известно за неговия живот, но се знае, че е написал дълга поема, "За природата", която е обобщавала неговите проучвания. Тази поема не достига до нас, запазени са само цитати от нея в други древни произведения. Но и това е достатъчно, за да бъдат до голяма степен реконструирани идеите на Анаксимандър. Според него светът се развива от неопределена, непозната субстанция, която той нарича апеирон. Земята, която е образувана от апеирона, е била покрита с вода в един начален етап от историята си, а растенията и животните са образувани от тинята. Хора не са съществували в тези ранни етапи, те се образуват впоследствие от рибите... Тази поема оказва донякъде влияние на по-късни мислители, включително Аристотел.

Не е ясно дали Анаксимандър е виждал фосили, нито дали е изучавал сравнителна анатомия на риби и хора. За жалост няма как да разберем какви доказателства е прилагал в подкрепа на идеите си. Но така или иначе неговата теория има някои сходства с еволюционната. Той е смятал, че след като всеки човек започва живота си като малко, недоразвито същество, което има нужда от време, за да се усъвършенства и оформи, то същото може да се приложи и към човешкият род като цяло - хората призхождат от по-низши, по-примитивни организми, чието развитие в течение на много векове е довело до произхода на човека. Анаксимандър прилага тази идея и към другите животниски видове. В същото време теорията му изглежда повлияна и от някои гръцки митове, като например историята за Девкалион и Пира, в която хората и племената произхождат от пръст или камък. Концепцията му за апеирон напомня много на китайското философско течение Тао и идеята за безформената и пуста земя от еврейската митология за сътворението, и др. Но дори да приемем, че теориите на Анаксимандър се базират в основата си на тогавашни религиозни митове, той си остава първият, който опитва да даде научно обяснение за произхода и развитието на космоса и живота.

В 6 в. пр. н. е. Ксенофан от Колофон (починал 490 г. пр. н. е.), който е бил ученик на Анаксимандър, доразвива неговите теории. Той изследва фосили на риби и миди, и заключава, че територията, която населяват, преди време е била морско дъно. Ксенофан смята, че светът се е формирал чрез кондензацията на водата и първичната кал. Той е първият човек, за когото е известно, че е използвал фосилни находки в подкрепа на своите теории за историята на Земята.

Древногръцкият историк Херодот (484-425 г. пр. н. е.) също изучава фосили на миди в Египет и ги привежда като доказателство, че някога Египет е бил под вода. Той също така описва долина в Арабия, планините Мокатан, където е намерил прешлени и ребра на някаква змия, която не може да идентифицира. Той приписва тези кости на крилати змии, които са били убити от ибиси. Днес знаем, че тези кости принадлежат на фосилни бозайници, дъждовете ги вадят на показ през всеки влажен сезон. Някои други древни историци също споменават и описват фосили, като Хипократ (460-357 пр. н. е.) е първият, за който е известно, че дори ги е колекционирал. При сравнително скорошни разкопки на Асклепион е намерен фосилизиран кътен зъб на слон.

Емпедокъл от Акрагант.

Друг гръцки философ от 5 в. пр. н. е., Емпедокъл от Акрагант (Сицилия) смята, че Вселената е изградена от четири елемента - земя, въздух, огън и вода. Тези елементи са свързани с две основни сили, които Емпедокъл нарича Привличане и Отблъскване. Постоянното взаимодействие на тези елементи, взаимното им привличане и отблъскване, формира Вселената. Емпедокъл смятал, че Земята дава живот на организмите, но че първите от тях са били безтелесни органи, които впоследствие се обединяват случайно в най-разнообразни комбинации чрез силата на Привличане, като тези от организмите, които са несподходящи за поддържане на живот, измират.

От днешна гледна точка тази теория изглежда странна, но все пак Емпедокъл формира своеобразна еволюционна теория - естествен отбор в отминали епохи е отговорен за живите същества, които наблюдаваме днес. Според Емпедокъл също така определящо за произхода на живота е взаимодействието на безлични сили, а не боговете. Разбира се, има съществени различия между идеите на Емпедокъл и съвременната теория за естествения отбор: Емпедокъл, например, определя своят "естествен отбор" като процес от миналото, не като процес, който продължава и днес. Ние не знаем на какви факти са се базирали идеите на Емпедокъл и неговите теории. Възможно е да е бил повлиян от митологичните същества, които са описвани като сглобени от части на различни животни - кентавър, сфинкс, химера... Но е възможно да е виждал и деформирани животни или фосилни кости на "чудовищни зверове".

Лукреций.

Много по-късно римският поет и философ Тит Лукреций Кар (99-55 пр. н. е.), пише своята дълга философска поема De Rerum Natura ("За природата на нещата"). В тази поема Лукреций предлага, освен всичко друго, "еволюционна" теория, сходна с тази на Емпедокъл. Което е иронично, тъй като той атакува Емпедокъл, често доста категорично, в други части на поемата. И според Лукреций видовете произхождат на Земята, формирани от случайната комбинация на различни елементи, а естествен отбор е отговорен за изчезването на някога живяли "чудовищни" организми. Тези организми, които оцеляват, оцеляват благодарение на своята сила, скорост или хитрост, или благодарение на това, че са полезни за хората. Но Лукреций не е вярвал, че нови видове могат да се образуват от някога съществували, но изчезнали такива - другата съществена част от съвременната еволюционна теория. Той отхвърля възможността сухоземните животни да са еволюирали от морски същества. Също като Емпедокъл той смята, че растенията и животните са "родени" от Земята и по този начин формирането на видове приключва, не продължава.

Wherefore, again, again, how merited
Is that adopted name of Earth - The Mother! -
Since she herself begat the human race,
And at one well-nigh fixed time brought forth
Each beast that ranges raving round about
Upon the mighty mountains, and all birds
Aerial with many a varied shape.
But, lo, because her bearing years must end,
She ceased, like to a woman worn. . . And what
She bore of old, she now can bear no longer. . .
Поемата на Лукреций представя философията на Епикур и е забележителна преди всичко с начина, по който предлага емпиричният метод като единствен при придобиването на знания:  "До кого да направим запитване? За какво? Може ли да съществува нещо по-сигурно от сетивата ни, с което да определяме грешното и истинното?" Тази творба се отличава също така с дългото, подробно обяснение на атомизма - схващането, че всичко в света е изградено от атоми. Лукреций не е автор на тази идея, тя принадлежи на древногръцкия философ Демокрит (5 в. пр. н. е.), но именно неговите описания и разяснения повлияват много писатели и мислители през Средновековието и Ренесанса, както и предизвикват опозиция от страна на Църквата.

(Цитатите от "За природата на нещата" на Лукреций са взети от тук.)

сряда, 3 ноември 2010 г.

Костенурките.

Изчезването на повечето от влечугите, като например динозаври и птерозаври, в края на мезозой оказва огромно влияние върху развитието на екосистемите в началото на терциер. Много други групи влечуги обаче продължават да процъфтяват през палеоцен. Една такава група са костенурките, разред Chelonia или Testudines.

Костенурките са влечугите с най-изобилни фосилни находки и най-голямо разнообразие в палеоценската фауна, които явно не са повлияни особено от събитията през К/Т периода. Утаечни пластове в американския щат Монтана осигуряват обилни находки, представящи непрекъсната линия от развитието на костенурките от късна креда и ранен палеоцен. Въпреки че няколко рода изчезват през К/Т периода, раннопалеоценските костенурки са представени от най-малко 15 рода и са с по-голямо разнообразие от който и да е последващ период. Освен това изкопаеми останки от тези животни се намират навсякъде, което дава основания на някои автори да наричат тази първа част от терциер "ерата на костенурките".

Palaeotrionyx.
И съвременните, както и вече изчезнали семейства костенурки, са представени в палеоценската фауна. От съвременните най-добре представени са сем. Trionychidae, костенурки с мек панцер. При тези водни животни плътен слой кожа заменя роговите плочи, които обикновено покриват горната страна на панцера - карапакс. Също както живите си съвременници тези раннотерциерни костенурки са били водни хищници, криещи се в тинята по дъното на реки и езера, и нападащи жертвите си из засада. Групата е разнообразна и широко разпространена през палеоцен, но откъслечните фосили, каквито най-често се намират, е трудно да бъдат идентифицирани. Родовете Trionyx и Aspideretes са съвременни трионихиди, които често са определяни като раннотерциерни членове на семейството. Къснокредните и раннотерциерни видове Aspideretes са били големи животни, с дължина на панцера 50 см. Малките палеоценски трионихидни костенурки от С. Америка може би принадлежат към изчезналия род Plastomenus, първоначално датиран като еоценски. Долната част на панцера - или пластрон, - който е редуциран при останалите членове на семейството, тук е добре развит.
Trionyx.

Други две съвременни групи костенурки, съществуващи най-рано от палеоцен, са блатните и каймановите костенурки. Каймановите костенурки от сем. Chelydridae са водни, дебнещи в засада хищници, с голяма глава, силни челюсти и дълга, люспеста опашка. Днешните алигаторови костенурки (Macroclemys), например, са известни с това, че дебнат в засада с широко отворена уста, примамвайки рибите със своя гърчещ се, червейоподобен език, докато мощните челюсти не уловят плячката. Това семейство костенурки е слабо представено във фосилните находки, най-вероятно заради самотният, изолиран начин на живот на членовете му, но изглежда води началото си от С. Америка. Protochelydra се среща най-рано в къснопалеоценски находки от Северна Дакота, а северноамериканският Emarginochelys - срещащ се от късна креда до началото на палеоцен - може би е дори още по-ранен член на групата.

Блатните костенурки от сем. Emydidae са с много по-типично устройство. Това семейство днес включва голямо разнообразие от видове, които са предимно водни. Те са били най-разнообразни през палеоцен в Азия, където вероятно са възникнали. През късен палеоцен групата на блатните костенурки в Азия е включвала изчезналите родове Anhuichelys, Hokouchelys и Pseudochrysemys (днешните Chrysemys, или боядисани костенурки). А в С. Америка блатните костенурки са представени от един, все още неименуван род (с работно име "Emydid C"), който е съществувал още през среден палеоцен, а в края на периода се превръща в най-широко разпространен. Тези животни са имали необичайно голяма глава, което дава отражение и върху карапакса, силно вдлъбнат отпред. Челюстите показват по-скоро смесена диета.
Пластрон на Adocus.

Растителноядните сладководни костенурки са представени през палеоцен от Adocus - големи животни с дължина на панцера до 80 см. Adocus съществуват от късна креда до късен палеоцен в С. Америка, а в Азия оцеляват до еоцен. Деликатно устроеният им панцер е сплеснат и издължен, със сравнително гладка повърхност, а пластронът има големи странични отвори, позволяващи по-свободно движение на крайниците. Всичко това показва, че Adocus са били изключително водни животни и добри плувци. От съвременните  костенурки подобни на тях са речните Dermatemys, срещащи се в Мексико и северната част на Централна Америка - реликтен вид, без живи родственици, който е класифициран в собствено семейство, Dermatemyidae. Дълго време Adocus са считани за ранни представители на Dermatemyidae, но сега са отделени в отделно семейство - Adocidae. Челюстите на Adocus притежават много по-сложни дъвкателни повърхности, каквито се наблюдават при растителноядните Dermatemys. Това е признак за сходна диета.

Друга изчезнала група палеоценски сладководни костенурки са сем. Baenidae, срещащи се от креда до късен еоцен в С. Америка. Тези животни са откривани предимно в утаечни скали на речни корита. Панцерът им е бил с изпъкнала, заоблена форма, имали са много дълга опашка и извити нокти на силните си крайници. Baenidae притежават много интересен модел на нарастване - когато бъдат достигнати размерите на възрастен индивид, плочите на панцера срастват и той спира да расте на ширина. Вместо това се увеличава неговата плътност, особено на пластрона, който в резултат на това достига изключителна дебелина при някои представители. Повечето баениди притежават мощни челюсти, като вероятно са се хранили с мекотели. Известни са няколко палеоценски рода от Монтана - Plesiobaena, Eubaena, Palatobaena, Stygiochelys и вероятно Neurankylus. Всички те успешно преминават К/Т границата. В едина уникална находка на фосилизиран панцер от големите палеоценски костенурки на Ню Мексико, Neurankylus, се различава дори оригиналният цвят на плочките - черни петна на червеникаво-кафяв фон.
Черепи на костенурки от сем. Baenidae.

Compsemys, причудлив представител на костенурките в къснокредната до среднопалеоценска фауна на С. Америка (а вероятно в началото на терциер и в Европа), първоначално е считан за член на сем. Baenidae. Впоследствие е преместен в друго семейство, Pleurosternidae, изчезнала група, чиято история може да бъде проследена назад до юра. Здравият панцер на тези средни по размери животни, с дължина около 30 см., е покрит с туберкули, които не се срещат при нито една друга група, което позволява дори малки фрагменти от панцера на животните да бъдат лесно идентифицирани. Наскоро открит череп на Compsemys показва поразително сходство с тези на алигаторовите костенурки - със силно извити (клюноподобни) челюсти с високи, тънки ръбове. Подобно на тези днешни костенурки Compsemys вероятно е бил воден хищник.

Въпреки че познанията ни относно костенурките от палеоцена на Ю. Америка са много ограничени, известни са поне две семейства, характеризиращи сладководната фауна на този континент. Змиеглавите костенурки от сем. Chelidae и сем. Pelomedusidae (афроамерикански страничношийни кастенурки). Двете семейства принадлежат към подразред Pleurodira, страничношийни костенурки, които прибират при опасност главата си в панцера чрез странично движение на врата. Всички останали, съвременни костенурки принадлежат към подразред Cryptodira и използват движение назад, за да прибират главата си. От страничношийните костенурки повечето представители на Chelidae имат изключително дълъг врат, което им позволява да дишат на повърхността на водните басейни без да показват тялото си. Сред палеоценските находки от това семейство има и представители на съвременния род Hydromedusa (южноамериканска змиеглава костенурка), които се появяват за първи път през ранен палеоцен в Патагония. Няколко вида афроамерикански страничношийни костенурки са се срещали през палеоцен в Ю. Америка, включително подобни на днешните Podocnemis (южноамериканска страничношийна речна костенурка). Находки от Chelidae и Pelomedusidae могат да бъдат проследени в този континент назад до късна креда. 
Hydromedusa.
Podocnemis.

Докато сладководните костенурки са честосрещани в палеоценски седименти, сухоземните са по-редки. Дори отчитайки факта, че животни обитаващи реки и езера имат по-голям шанс да бъдат фосилизирани, изключително редките находки на сухоземни костенурки от палеоцен все пак показват, че това едва ли се дължи само на особености на процеса фосилизация, а по-скоро на слабото им присъствие в тогавашните съобщества. Basilemys, голяма сухоземна костенурка със слоноподобни крайници и панцер, достигащ 1 метър дължина, е обитавал С. Америка през късна креда. Тези влечуги измират по време на К/Т периода, подобно на много други големи сухоземни животни. По-малки (с дължина на панцера 30 см.) сухоземни костенурки, които оцелява до палеоцен в С. Америка, са Agomphus, далечни родственици на днешните блатни костенурки от сем. Kinosternidae. Също като последните, панцерът на Agomphus е имал овална форма, силно изпъкнал, с гладка повърхност, което предполага, че са обитавали сходни хабитати. Истински костенурки от сем. Testudinidae не се срещат в С. Америка до началото на еоцен, но първите представители на това съвременно семейство са присъствали в къснопалеоценските съобщества на Азия. Мигрирането им в С. Америка започва по време на затоплянето в началото на еоцен, когато благоприятните климатични условия позволяват и на много бозайници да мигрират между северните континенти през провлак в големите географски ширини.
Панцер на Agomphus.

Други сухоземни костенурки са Planetochelys, срещащи се от късен палеоцен до ранен еоцен в С. Америка. Въпреки че не са добре проучени, тези високоспециализирани животни имат много сходства с днешните костенурки Terrapene, например по подвижно свързания пластрон, който им позволява при опасност плътно да затворят панцера след като приберат главата и крайниците. Формата на панцера показва, че тези животни са били предимно сухоземни, което се потвърждава и от следите оставени от зъбите на гризачи. Челюстите на  Planetochelys са характерни за всеядни животни.

Може би най-необичайните от всички палеоценски сухоземни костенурки са рогатите костенурки от сем. Meiolaniidae, като ранните представители на тази група са все още непознати. Забележителни фосили от род Meiolania от това семейство, са открити в плейстоценски пластове в Австралия, близо до остров Лорд Хоу. Тези гигантски животни от късен неозой са имали дължина на панцера над 1 метър. Черепът им е притежавал големи роговидни израстъци, а опашката завършва с костни образувания. Meiolaniidae са добре проучени, сравнително съвременни костенурки, чиито фосилни находки в Аржентина могат да бъдат проследени назад до късна креда. Рогатите костенурки са част от южноамериканските влечуги до началото на еоцен. По-късното им присъствие в Австралия е в резултат на миграция през Антарктида, която тогава е била без ледена покривка и свързана с другите две големи суши.

В областта на моретата истинските гиганти сред костенурките са вече измрели дълго преди началото на палеоцен. В късна креда сем. Protostegidae е представено от гигантски морски костенурки като Archelon, с дължина на панцера над 2,2 метра, но тези животни изчезват преди К/Т периода. Родствениците на днешните морски костенурки от сем. Cheloniidae обаче са процъфтявали в океаните на ранен неозой. Подобно на днешните морски костенурки те са притежавали големи предни крайници видоизменени в плавници, както и тенденция за редуциране и сплесване на масивния, костен панцер, наследен от предшествениците им. Много мезозойски и раннонеозойски представители притежават все още примитивни черти и биват класифицирани често в изчезналото сем. Toxochelyidae, но разграничаването им от съвременните  Cheloniidae е трудно. Представителите на Toxochelyidae вероятно не са били добри плувци, а орбитите им са насочени нагоре, не напред както при съвременните морски костенурки. Това означава, че тези животни вероятно са обитавали дъното на плитководни морета. Osteopygis, откривани в къснокредни до раннопалеоценски морски утаечни пластове в САЩ са типични представители на тези примитивни влечуги, достигащи дължина на панцера до 70 см. Много съвременни представители също се срещат в палеоценски пластове. Например останките на голяма морска костенурка от ранен палеоцен в Илинойс, класифицирана към Chelonia - родът, към който принадлежат днешните зелени морски костенурки. Докато повечето от случаите на определяне на късномезозойски или раннонеозойски фосили на влечуги към съвремени родове, впоследствие са доказани като грешни, тази класификация все още очаква потвърждение.
Osteopygis emarginatus.

Съвременните морски костенурки включват и още едно семейство, Dermochelyidae, представено единствено от кожестите костенурки, Dermochelys. Това е най-голямата съвременна костенурка, с дължина на панцера над 2 метра. При кожестите костенурки се наблюдава силна редукция на костния панцер, като вместо това притежават кожеста обвивка, донякъде сходна с тази на трионихидите. Фосилните находки от Dermochelyidae са много малко. Въпреки това е ясно, че семейството има дълга история, като най-ранните представители са се срещали още през късна креда. Малко се знае за кожестите костенурки през палеоцен, но предимно еоценският род Eosphargis, големи животни с дължина на панцера над 1-1,5 метра, може би се появяват за първи път през късен палеоцен в източните части на САЩ.

Изненадващо, през късна креда и ранен терциер морските костенурки са представени и от видове страничношийни костенурки от семейство, което беше споменато по-горе - Pelomedusidae. Тъй като днешните представители на това семейство са изключително сладководни, можем да предположим, че в миналото са обитавали плтководни, крайбрежни морки води. Много широко разпространени са били например представителите на род Taphrosphys, който се появява първо през късна креда в С. Америка, но в началото на неозой вече се е срещал от двете страни на Атлантическия океан, включително в територии от днешните Северна и Южна Америка, Европа и Африка. Видовете от р. Taphrosphys са имали овален панцер, без отличителен релеф, който не е бил много изпъкнал. Африканският вид Taphrosphys congolensis от палеоценски пластове на Кабинда, по-рано известен като Bantuchelys, е имал дължина на панцера около 50 см. Заедно с други пеломедузидни костенурки са обитавали плитки вътрешни морета, разположени на територията на днешна Сахара и свързани чрез предшественика на Средиземно море с Атлантическия океан.

Също както и днес, костенурките са обитавали разнообразни хабитати през палеоцен. От ранен палеоцен датират едни от най-разнообразните сладководни костенуркови съобщества. Общо около 50 рода костенурки са известни от палеоценски пластове, които съставляват около 40% от всички родове влечуги от този период. С изключение на няколко изчезнали групи, почти всички съвременни семейства костенурки възникват през палеоцен, както и някои от днешните родове. Може да се каже, че костенурките притежават един наистина много успешен, вечен дизайн, който се е оказал изключително подходящ, за да преживеят събитията, които променят драматично екосистемите на земята преди около 65 милиона години.

вторник, 2 ноември 2010 г.

Бозайниците през Палеоцен (част девета).

Пантодонти, уинтатери и ксенунгулати - първите едри тревопасни бозайници.

Пантодонтите, уинтатерите и ксенунгулатите са първите животни достигнали големи размери след изчезването на сухоземната мегафауна в края на креда. Първоначално тези животни са били класифицирани в общ разред - Amblypoda. Но днес са отделени в отделни разреди - Pantodonta, Dinocerata и Xenungulata.

Пантодонтите са добре известни от палеоцена на С. Америка и Азия. Техните най-ранни представители са били все още дребни по размер и всеядни. Изненадващо, един техен представител - Alcidedorbignya - наскоро бе открит в раннопалеоценски пластове в Ю. Америка, което показва, че миграциите по суша между Ю. Америка и Азия през С. Америка са били възможни по това време. По-късните пантодонти са изключително растителноядни животни. В сравнение с други групи палеоценски бозайници техният скелет е много добре проучен.

Палеоценските пантодонти на Азия са били сравнително дребни, като Archaeolambda, които са притежавали нокти и са можели да се катерят по дърветата. Северноамериканските пантодонти са били като цяло по-едри. Палеоценските представители включват, както общи форми като Pantolambda или Caenolambda, така и по-специализирани членове като Titanoides и Barylambda.
Реставрация на северноамерикански пантодонти.

Barylambda е бил един от най-едрите палеоценски бозайници, с телесно тегло до 650 килограма. Скелетът показва, че това тромаво животно е стояло на големите си задни крайници и масивна опашка, което им е позволявало да повдигнат горната част на тялото за достигане на по-високи клони, подобно на изчезналите гигантски ленивци Megatherium.
Megatherium.

Titanoides, животно тежащо близо 150 килограма, е притежавал саблевидни горни кучешки зъби, големи предни крайници и здрави нокти. Нито един съвременен бозайник не притежава подобна анатомия на крайниците, но при няколко изчезнали групи, като еоценските до плейстоценски халикотери, се наблюдават сходни адаптации. Titanoides може да е използвал крайниците си, за да изкопава храна или за да разкъсва трудносмилаеми растителни части.
Скелет на Titanoides primaevus.
Реставрация на Titanoides primaevus.

Най-успешната група пантодонти са представени от Coryphodon и неговите потомци. Coryphodon е бил изключително масивен пантодонт (с тегло до 300 кг.). Особено мъжките са притежавали големи кучешки зъби, подобни на тези на хипопотам. Подобно на тези днешни бозайници Coryphodon може би е водил земноводен начин на живот и е използвал бивните си за да изкопава подземни растителни части. Coryphodon се появява в късен палеоцен и се среща в цялото северно полукълбо през ранен еоцен. В Азия тези най-дълго съществували представители на пантодонтите се срещат до олигоцен, когато биват изместени от група носорози със сходни адаптации.
Coryphodon.

Уинтатерите (разред Dinocerata) са най-добре известни на широката аудитория от гротескните изображения на Uintatherium. С максимално телесно тегло от 4500 килограма, това е първият наистина гигантски бозайник. Еоценските уинтатери са притежавали няколко чифта тъпи рога, които вероятно са били покрити с кожа. Горните кучешки зъби са големи и саблевидни. Тези животни са били схадви в екологично отношение с днешните носорози.

Първите представители на разред Dinocerata се появяват през късен палеоцен в Азия (Prodinoceras) и С. Америка (Probathyopsis). Азиантските и северноамериканските представители са близкородствени, така че предоставят важни данни за сравнителното датиране на двата континента. При фосилните челюсти на тези ранни уинтатери се забелязват два типа с различна форма и размер, които са представени при мъжките (по-едри) и женските (подребни) от един и същ вид. Мъжките Probathyopsis са достигали телесно тегло до 300 килограма, подобно на съвременните тапири, Tapirus bairdi. Въпреки, че са дребни в сравнение със своите гигантски потомци, палеоценските уинтатери са сред най-едрите бозайници на своето време. Забелязва се, че горните им кучешки зъби вече са започнали да се увеличават, по-изразено при мъжките, но все още не притежават рога. техните дъвкателни зъби притежават отличителни характеристики на по-късните членове на разреда, с по две гънки на зъб, което е адаптация за по-ефективна обработка на растителна храна.
Скелет на Prodinoceras martyr.

Една забележителна група южноамерикански бозайници, разред Xenungulata,  може би е родствена на уинтатерите. Този слабопроучен разред е представен от среднопалеоценският род Carodnia (което на местен език означава "гръм"), най-големите палеоценски бозайници, откривани в Ю. Америка. Carodnia са познати от фосилни находки, включително и непълен скелет, открит във варовикова кариера в Бразилия, както и от части на челюсти от Патагония. Подобно на уинтатерите Carodnia са били масивни животни за времето си, притежаващи големи кучешки и дъвкателни зъби с по няколко гънки. Това навежда на мисълта, че уинтатерите и ксенунгулатите имат общ предшественик, мигрирал от Азия до Ю. Америка, или обратно, през палеоцен. Някои данни сочат, че този предшественик е бил близкороствен на дребни азиатски бозайници, наречени анагалиди, които от своя страна са родствени на гризачите и зайците. В резултат на това има предложение уинтатерите да се разглеждат като гигантски рогати зайци, но тази хипотеза все още предстои да се докаже.

Възможни южноамерикански потомци на ксенунгулатите са изчезналите пиротери. Те са най-добре представени от олигоценските Pyrotherium, подобни на слон, но все още слабо проучени бозайници.
Pyrotherium.

Произход на космена покривка и пера в хода на еволюцията.

Малко вероятно е възникването на козината и перата в хода на еволюцията да е пряко свързано с метаболитните промени, които настъпват при ранните бозайници, птици и техните предшественици. Пълна космена покривка се наблюдава за първи път при бозайниците много след като техните предшественици, терапсидите, се сдобиват с бозайникоподобен метаболизъм. Еволюцията на перата от своя страна не е свързана с развитието на ендотермен метаболизъм при птиците, тъй като най-ранните покрити с пера птици (Archaeopteryx), всъщност са ектотермни.

Никоя друга анатомична особеност не разграничава така красноречиво бозайниците и птиците, както перата и козината. Но така както двете групи се различават помежду си, се отличават и от всички останали гръбначни животни, благодарение на една обща физиологична особеност - способността да запазват постоянна телесна температура в покой, или ендотермия. Това често е ставало повод грешно да се допуска, че птиците и бозайниците имат общ произход.

Традиционно се смята, че развитието на космена покривка и пера, ускореният метаболизъм, както и способността за поддържане на относително постоянна температура на тялото, са тясно свързани. Приема се, че по-голямата способност за регулация на телесната температура при предшествениците на днешните бозайници, е резултат от едновременното развитие на повишени метаболитни процеси и изолационна космена покривка. По същия начин, тъй като ендотермната терморегулация се счита за неразривно свързана със способността за летене, се приема, че перата при предшествениците на днешните птици се развиват в отговор, както на нуждата от термоизолация, така и на летене. В действителност нито едно от тези предположения не съответства на наличните доказателства. Последни находки, фосилни и физиологически, показват, че повишената способност за терморегулация и при птици, и при бозайници, вероятно няма нищо общо с промените в метаболизма. По всичко изглежда, че перата и полетът при птиците са се появили много преди ендотермията.

Ендотермията е едно от най-големите еволюционни предимства, които се развиват при гръбначните животни, както и характеристика, отличаваща съвременните птици и бозайници от влечугите, земноводните и рибите. Ендотермията, която се развива независимо при бозайниците и птиците, представлява голямо предимство за организмите в екологично и физиологично отношение и може би е основна причина за днешния успех на тези две групи и широкото им разпространение в разнообразни водни и сухоземни екосистеми. Повишеният капацитет на белите дробове, потреблението на кислород, както и производството на вътрешна топлина (чрез аеробен метаболизъм), които са отличителни характеристики на ендотермията, позволяват на птици и бозайници да поддържат постоянна телесна температура в широк диапазон от температурни условия на околната среда. В резултат те могат да обитават местности с ниски или променливи температури, както и да водят нощен начин на живот, което е невъзможно за ектотермните животни. С малки изключения, ектотермните животни, като влечугите например, разчитат на анаеробни метаболитни процеси в случаите на бързо ускорително придвижване. Обикновено бързо настъпва умора, в резултат на натрупването на млечна киселина. Ендотермните животни от своя страна са в състояние да издържат сравнително високи нива на физическо натоварване за дълъг период от време.

Доскоро беше практически невъзможно да се докаже ендотермията при изчезнали животински видове. Ендотермията е процес, почти изцяло присъщ на меките тъкани, които оставят оскъдни или никакви вкаменелости. Физиологично ендотермията се постига чрез много високи нива на клетъчна консумация на кислород. В лабораторни условия тези показатели при бозайници в покой са обикновено 6 до 10 пъти по-високи от същите при влечуги със същото телесно тегло и температура на околната среда; показателите на птиците са дори още по-високи - около 15 пъти повече от тези на влечугите. В естествени условия метаболизмът на бозайниците и птиците често надвишава този при влечугите до 20 пъти. За да поддържат толкова високо равнище на консумация на кислород, при ендотермните животни настъпват големи анатомични и функционални промени за улесняване на транспорта и доставката на кислорода до тъканите. И при бозайници, и при птици се увеличава значително капацитета на белите дробове (при птиците и чрез т.нар. дивертикули), а двата кръга на кръвообръщението са напълно отделени. Повишава се обема на кръвта, заедно с по-високото потребление на кислород, както и завишената активност на тъканните ензими. Тези основни характеристики на ендотермната физиология е малко вероятно да бъдат съхранени във вкаменелости на птици, бозайници или други организми. Следователно предположенията за наличие на ендотермия при различни изчезнали гръбначни животни са хипотетични и се базират главно на съпоставянето между метаболитните процеси и някои косвени данни като съотношение хищник-жертва.

Съвременните проучвания за възможна ендотермия при изчезнали таксони наблягат на костната хистология и най-вече съпоставяне темповете на растеж на ектотермни и ендотермни животни. При съвременните гръбначни са установени два хистологични типа на изграждане на костите, различаващи се по фибрилната структура и степен на васкуларизация. Костите на съвременните земноводни и повечето влечуги спадат към така наречения ламеларно-зонален тип. Характерното за него е, че се наблюдават сравнително малко първични остеони в костната тъкан, които са свързани с образуването на костно вещество. В хистологично отношение ламеларно-зоналните кости имат стъпаловидна стуктура, с характерни кръгове на нарастване, а васкуларизацията е слаба. При фибро-ламеларните кости на птици, бозайници и динозаври в по-голямата част от костта се наблюдават обилно количество първични остеони, които произвеждат влакнеста костна тъкан. Фибро-ламеларните кости имат добра васкуларизация.

Ламеларно-зоналните кости се асоциират с ектотермията, а фибро-ламеларните - с ендотермията. Фибро-ламеларните кости са свързани с бързия растеж, което изисква интензивно отлагане на калциеви соли. Това интензивно нарастване е възможно само при организми с високи нива на метаболизъм, което пък се свързва с ендотермията. Т.е. основната връзка е между темповете на растеж и костната структура. Общоприето е, че темповете на растеж на съществуващите ендотермни животни в дивата природа са с порядък по-високи от тези на ектотермните. Като се има предвид, че повечето кости при динозаврите са фибро-ламеларни, може да се предположи, че темповете им на растеж са бързи, като при птиците и бозайниците. Което може да означава, че също като последните, динозаврите са били ендотермни животни.

Голяма част от тези предположения обаче са в противоречие с наличните данни от областта на палеонтологията и биологията. Например, известно е, че фибро-ламеларни кости са представени и в скелетите на днешните костенурки, крокодили и гущери. Освен това в дългите кости на много родове динозаври се наблюдават и двата хистологични типа костна тъкан - фибро-ламеларна и ламеларно-зонална.

Независимо от разликите в костната хистология, съществуват основания да се съмняваме в степента на различие в темповете на нарастване на ендотермните животни и влечугите, особено крокодилите, които са най-близките живи родственици на днешните птици и динозаврите. Според най-често цитираното сравнително изследване, регресията в темповете на нарастване (г/ден) при всички амниоти продължава до достигането на максималните размери при възрастните, като при влечугите този показател е по-висок със само 10% от този на ендотермните животни . Но критериите при изчисляването на регресията в нарастването на телесното тегло не са равностойни: ендотермните животни достигат максимално телесно тегло при полова зрялост и би било по-подходящо да се използва за сравнение този показател и при ектотермните в същия онтогенетичен етап, за по-голяма точност. Например, американският алигатор (Alligator mississippiensis) е посочен в изследването с максимално телесно тегло на възрастен индивид от 160 кг., което надвишава много теглото на индивидите в момента на достигане на полова зрялост - около 30 кг. На базата на тези данни нарастването на телесната маса на алигаторите е определено на 28 г/ден, а би било по-точно да е 42 г/ден. Когато бъдат взети предвид тези допълнителни данни, стойността на нарастване на телесното тегло при тези влечуги се оказва 4 пъти по-висока от тази на торбестите и много се доближава до стойностите на повечето плацентни бозайници. Особено важно е да се отбележи, че процентът на нарастване на телесното тегло при алигаторите е на практика неотличим от този на двукракият динозавър Troodon. Освен това Chinsamy и Dodson сравняват темповете на нарастване при три рода динозаври и не намират особени разлики (Chinsamy and Dodson, 1995).

От друга страна сравняването на съотношението на кислородните изотопи, О16:О18, във фосилизирани кости, показва макар и малки разлики в температурата на крайниците и вътрешната телесна температура при големите динозаври (в случая Nanotyrannus). Това показва, че тези големи динозаври са били ендотермни, тъй като съвременните ендотермни животни, за разлика от ектотермните, са способни да поддържат относително едни и същи стойности на периферната и вътрешната телесна температура. За съжаление известни са много противоречиви данни, които показват, че много птици и бозйници поддържат голяма разлика в периферната и вътрешната температура на тялото. Разбира се, възможно е съдържанието на кислородни изотопи във фосилизираните кости да е повлияно от условията на средата. Следователно съотношението на кислородните изотопи във фосилизирани динозавърски кости може да ни даде съвсем малко информация за метаболитната физиология на тези животни.

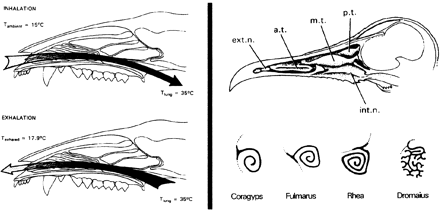
За разлика от по-горе представените факти, спиралната кост (в носната кухина) има силна функционална връзка с ендотермията. И при бозайниците, и при птиците ендотермията е тясно свързана с високи нива на консумация на кислород и съответно повишена вместимост на белите дробове. Спиралната кост, която се среща при 99% от всички бозайници и птици, улеснява обмена на топлина и влага между вдишвания въздух и лигавицата. По този начин тя значително ограничава загубата на влага и топлина, които иначе биха съпътствали увеличената вентилационна способност на белите дробове на ендотермните животни. Освен това отдавна се предполага, че появата при птици и бозайници на съдова мрежа между спиралната кост и мозъка се дължи на факта, че мозъкът използва тази система като охладител. Улесняването на охлаждането на мозъка би било особено важно при повишена телесна температура, или при интензивно физическо натоварване, когато се увеличава производството на вътрешна топлина.

Съществуващите бозайници, включително първичните яйцеснасящи (Prototheria) и живораждащите (Theria), вероятно произхождат от общ предшественик преди около 160 милиона години. Повечето бозайници поддържат сравнително постоянно ниво на метаболитни процеси и имат сходни анатомични особености с останалите ендотермни животни - космена покривка, ануклеарни еритроцити, белодробна структура, високо насищане на кръвта с кислород, диафрагма, потни жлези и т.н. Затова е логично да се предположи, че общият им мезозойски предшественик е притежавал подобна ендотермна физиология.

Изследването на физиологичния статус на по-древните бозайници, или протобозайници, се основава на фосилни свидетелства за техния метаболизъм. Бозайниците вероятно еволюират от цинодонтите или т.нар. бозайникоподобни влечуги в края на триас (преди около 200 милиона години) и отдавна се предполага, че физиология доближаваща се до ендотермната са притежавали още късните терапсиди.

Във фосилните находки на бозайници и бозайникоподобни влечуги наличието на назална спирална кост най-лесно се открива по костните ръбове, чрез които тя се прикрепя към стените на носната кухина. Разположението на прикрепящите ръбове на обонятелната спирална кост са разположени дорзално, далече от основния поток вдишан въздух, а тези на респираторната спирална кост в антеролатералната част, директно на пътя на вдишвания въздух. Костни ръбове за обонятелна спирална кост се срещат при всички бозайникоподобни влечуги, включително и примитивните пеликозаври. Докато елементарни антеролатерални ръбове за залавяне на респираторна спирална кост за първи път се появяват при някои големи, къснопалеозойски терапсиди, като Glanosuchus. Това означава, че началните етапи в развитието на бозайникоподобна кислородна консумация от организмите са започнали още в края на перм (преди около 250 милиона години) или 40 до 50 милиона години преди появата на бозайниците.

Наличието на елементарна спирална кост при пермските тероцефали е съществено за изучаването на еволюцията на ендотермията и космената покривка при предците на бозайниците. Моделите, свързващи произхода на космената покривка с началните етапи на развитие на ендотермия, са до голяма степен неточни, ако първите етапи на развитие на бозайников метаболизъм се наблюдават още при големите, къснопермски терапсиди. Много тероцефали изглежда са били активни хищници, достигащи размерите на куче, мечка или лъв (от 20 до 100 кг.) и са обитавали райони със субтропичен до тропичен климат. Няма доказателства, че са притежавали космена покривка. Но те са били достатъчно едри, така че независимо от типа на покривката, топлинната проводимост на телата им е съответствала на тази на едрите бозайници. Като се имат предвид климатичните пояси, които са обитавали, тероцефалите вероятно не са се нуждаели от специално изолационно покритие за поддържане на телесната температура. Следователно е много по-вероятно началните етапи на развитието на бозайников метаболизъм да са свързани с повишаването на кислородната консумация, отколкото с терморегулацията.

Цинодонтите от среден триас (напр. Thrinaxodon и Massetognathus), както и най-ранните бозайници (напр. Morganucodon) изглежда са притежавали ниво на развитие на респираторната спирална кост подобно на това на днешните бозайници. Следователно степента на белодробна вентилация, а оттам и метаболизма на ранните бозайници, по-специално на терапсидите от триас, е възможно да са достигали ниво на развитие като това на днешните бозайници. За част от тези ранномезозойски терапсиди се предполага, че са притежавали изолационна космена покривка, което се свързва със същинска ендотермна физиология. Доказателствата за козина при терапсидите се основават главно върху наличието на инфраорбитални ями и ръбове при някои триаски цинодонти. Предполага се, че те са свързани с наличието на косми със сензорна функция, а следователно и изолираща козина, която е покривала останалата част от тялото. Но ростралните отвори не свидетелстват задължително за наличието на сензорно окосмяване. Подобни образувания се намират и в черепите на ектотермни животни, по чиято люспеста кожа липсват сензорни косми или козина. При гущерът Tupinambis, например, ростралните отвори са почти еднакви по форма, брой и разположение с тези на цинодонтът Thrinaxodon. Във всеки случай е ясно, че сетивните косми по муцуната показват наличие на козина по тялото. Произходът на космената покривка не е добре изяснен, но ако първоначалната функция е била сензорна, е възможно сензорните косми да отразяват примитивизъм и да са се появили много преди цялостна изолационна космена покривка на тялото.

Изненадващо, най-новите данни сочат, че развитието на пълна космена покривка е невъзможно преди появата на най-ранните бозайници. Фосилни находки показват, че Хордеровата жлеза, която се свързва с наличието на козина при съвременните бозайници, се е срещала и при древните морганукодонти (напр. Morganucodon), но отсъства при терапсидите. За разлика от очните мукосерозни жлези на останалите четириноги, Хордеровата жлеза на бозайниците отделя предимно мастен секрет. Функциите на Хордеровата жлеза са проучени при гризачи, при които отделеният от нея мастен секрет се разнася по козината. Секретът на Хордеровата жлеза покрива козината и подобно на мастния секрет при птиците представлява бариера срещу студ, влага и определя отражателната способност на космената покривка.

По този начин наличните данни показват, въпреки все още да предстои потвърждение, че специализацията в назолакрималния комплекс при ранните бозайници може да се окаже свързана с трансформацията на Хордеровата жлеза в мастна и освобождаването на нейния секрет върху космената покривка. Това може би е свързано с появата на козината като изолационна покривка на тялото.

Възможно е изолационната космена покривка да става необходима за таксоните терапсидни бозайници, отличаващи се с малки размери (около 50 мм дължина на тялото) и нощен начин на живот. Може да се приеме, че космената изолационна покривка се развива при бозайниците във връзка с ендотермната регулация, но дълго след като бозайников тип метаболизъм вече е бил типичен за терапсидите.

Съвременните птици са ендотермни животни, като много от тях (особено пойните) поддържат най-висока телесна температура и високо ниво метаболитни процеси спрямо телесно тегло сред всички четириноги. Фосилни находки показват, че съвременните разреди птици са били определени още преди около 60 милиона години, ето защо ендотермната физиология на птиците може би е била вече добре представена през късна креда и началото на терциер.

Клас Птици е монофилетична група и не съществува родствен раннонеозойски таксон от който да може да се изведе логически появата на ендотермията (за разлика от отделните подгрупи при бозайниците - еднопроходни, торбести и плацентни). Най-ранната известна птица е Archaeopteryx lithographica, от късна юра (преди 145 милиона години). Тя притежава завършени крила и оперение на опашката, както и поразително сходство в някои отношения със скелети на месоядни динозаври. Въпреки това типът терморегулация е все още неизяснен. По-ранни косвени доказателства сочат, че Archaeopteryx  вероятно е притежавал ектотермна физиология и много аспекти от анатомията и начинът на размножаване на съвременните птици свидетелстват, че способностите за летене предшестват ендотермията в еволюцията. Независимо от това, Archaeopteryx са понякога определяни условно като ендотермни , отчасти защото се предполага, че добре развитите им контурни пера са възпрепятствали достатъчно излъчването на телесна топлина в околната среда. Въпреки това, наличието на съвкупност от качества като летателна способност и оперение по тялото, и крилата в мезозойски предшественици на съвременните птици, не са задължително доказателство за наличието на ендотермия. Подобно на съвременните влечуги някои птици използват поведенчески методи за терморегулация и абсорбиране на топлина от околната среда през перушината. По време на студените нощи температурата на тялото на Geococcyx californianus (голяма земна кукувица) пада с около 4 градуса. След изгряване на слънцето земните кукувици излагат на припек по-слабо оперените части на тялото си  и по този начин го затоплят, ектотермично. Освен това и други, напълно оперени птици, могат лесно да абсорбират и използват слънчева енергия. Ектотермни Archaeopteryx, които са обитавали местности с топъл и слънчев климат, е възможно да са имали сходни поведенчески механизми за терморегулация. Напълно оперените Archaeopteryx, независимо дали ектотермни или ендотермни, вероятно лесно са поддържали постоянно ниво на телесна температура. Следователно появата на добре развита перушина толкова рано в еволюцията на птиците е по-правилно да се свърже с усъвършенстването и развитието на летателните им способности, отколкото с терморегулацията.

Анатомичните сходства между някои мезозойски архозаври и Archaeopteryx са факт и много учени ги приемат като доказателство за близкородствена връзка между дромеозаврите (като Velociraptor и Deinonychus) и примитивните птици. Следоватлено метаболитният статус на тези динозаври може да предостави ценна информация относно екто- или ендотермната физиология на ранните птици.

Наличието или отсъствието на ендотермия при динозаврите е тема, представляваща обект на понякога дори ожесточени дискусии през последните повече от 20 години. Ясно е, че големите динозаври са имали пасивна терморегулация. Но както беше отбелязано по-горе, някои данни (като съотношение хищник-плячка, поза на тялото, костна хистология) свидетелстват недвусмислено в подкрепа на ендотермия.

Определянето на наличие или липса на дихателна спирална кост при тероподите може да осигури най-прякото доказателство за метаболитния им статус. Но няколко фактора усложняват изследването на еволюцията на спиралната кост при птиците и техните предшественици. Въпреки че спиралната кост се калцифицира и вкостява, при много от съществуващите таксони тази структура често остава хрущялна, с липса на характерните костни места за захващане в носната кухина, което значително намалява шансовете за директно доказване на наличието или липсата и в изчезнали таксони. Въпреки това е установено, че наличието на дихателна спирална кост при днешните ендотермни животни е свързано с пропорционалното разширяване на напречното сечение на носната кухина. Това е във връзка както с увеличената вентилация на белите дробове, така и с доставянето на по-голям обем въздух в спиралната кост. Показателно е, че относителната ширина на носната кухина при все по-късните и бозайникоподобни терапсиди нараства и се доближава до, а при Thrinaxodon дори достига, тази на бозайниците и птиците.

Най-нови методи с използването на компютърна томография улесниха много неинвазивното детайлно изследване на носната кухина при фосилизирани екземпляри. При Tyrannosaurus сканирането ясно показва, че е малко вероятно тези животни да са притежавали респираторна спирална кост: такива кости отсъстват от изкопаемите останки и, което е по-важно, напречното сечение на носната кухина е идентично с това на днешните ектотермни животни. Освен това компютърното сканиране на носните кухини и на други тероподни динозаври, Ornithomimus и Hypacrosaurus, също показва, че са били твърде тесни и с недостатъчен обем за разполагането на спирална кост в тях. Тези характеристики са изключително сходни с данните при съвременните влечуги (напр. крокодилите) и е силно доказателство за ниското ниво на белодробна вентилация и ектотермия при тези динозаври.

Тесните назални пътища при тероподите са свързани с наличието на допълнителни обемни пневматични синуси и техните отличителни външни отвори. За разлика от тях, при днешните птици липсват допълнителни анторбитални синуси, защото техните широки назални пътища са почти запълнени от респираторна спирална кост и няма достатъчно място за допълнителни синуси. Забележително е, че Archaeopteryx притежава анторбитални отвори и широки допълнителни синуси, подобно на тероподите. Следователно, подобно на своите предшественици, тероподните динозаври, е малко вероятно Archaeopteryx да е притежавал респираторна спирална кост или ендотермен метаболитен статус. За ввсеки случай мезозойският климат е бил толкова мек и благоприятен, че дори ранноюрските птици са били в състояние лесно да поддържат относително постоянно ниво на терморегулация.

Следователно е най-логично да се приеме, че перата са се развили във връзка с летенето, а не с терморегулацията. Както посочва Feduccia (1996), перата са най-сложните рогови образувания на епидермиса, при всички животни те са разположени аеродинамично, а контурните и маховите пера имат тенденцията да дегенерират при вторично нелетящите видове. Много е вероятно ендотермията при птиците да еволюира дълго след развиване на летателните им способности, като начин за подобряване на издържливостта при дълъг полет, а не за регулиране на температурата.

Неотдавна описани фосилни находки на раннокредни влечуги в Китай (провинция Ляонин) се предполага, че представляват пернати тероподни динозаври. Тези твърдения следва да се разглеждат с повишено внимание. Компсогнатусът Sinosauropteryx притежава по средната линия на гърба подобни на косми влакна, които се простират по протежение на врата, гърба и опашката. Първоначалните заключения, че тези влакна най-вероятно представляват протопера, всяко от които се състои от централна ос и разклонения, все още не са потвърдени. Подробното изследване на тези влакна показва, че е много вероятно да представляват мацерирали колагенови фибри. Тези данни съответстват с наличието на такива влакна и при други тероподи в Китай.

Други два рода, Protarchaeopteryx и Caudipteryx, притежават добре обособени пера, но статусът им на тероподи е съмнителен. Има твърде малко останки от Protarchaeopteryx, за да се направи окончателен таксономичен анализ. Въпреки това дългите предни крайници не са в противоречие с родството с птиците. Caudipteryx притежава къси, оперени предни крайници и е много вероятно да представлява вторично нелетяща птица. Основанията за класифицирането му като теропод се базират главно на три недвусмислени анатомични особености, които го определят като протоптица. Те включват: (1) срастване в областта на костите на долната челюст - квадратоюгална и квадратна - или липса на последната; (2) контакт на квадратоюгалната кост със слепоочната; (3) израстък на седалищната кост, срастващ се с пубиса. Въпреки това, при Caudipteryx тези особености или не съществуват, или са твърде неясни. По-рано публикувани илюстрации сочат, че няма контакт между квадратоюгалната и квадратна кост, а квадратоюгалната е твърде къса за свързване със сквамозата. В крайна сметка израстъкът на седалищната кост може да съществува или не при Caudipteryx, но със сигурност подобна структура се наблюдава при някои птици.

Развитието на ендотермен метаболизъм и козина и пера при ранните бозайници и птици съответно, имат коренно различна хронология. Наличието на добре развита респираторна спирална кост при среднотриаски цинодонти показва, че достигането на високи, бозайникоподобни нива на метаболитни процеси вероятно предшества произхода на бозайниците с поне 10-15 милиона години. Въпреки това, най-ранните изкопаеми данни за развитието на Хордерови жлези показват, че развитие на космена покривка не се среща преди появата на бозайниците. Много е вероятно малките размери и нощният начин на живот на първите бозайници също да са изиграли важна роля за развитието на изолационна космена покривка за подпомагане на терморегулацията.

Традиционно се приема, че липсата на респираторна спирална кост при тероподните динозаври и Archaeopteryx е силно доказателство в подкрепа на схващането, че ранните птици са били ектотермни. Така че появата на пера и способности за летене вероятно предхождат развитието на ендотермия при птиците. Най-логично е да предположим, че перата се появяват в отговор на нуждата от ареодинамика, а не терморегулация.