събота, 9 октомври 2010 г.

Културни иновации, условия на средата през Плейстоцен и демографски промени.

Добре известно е, че трудът на Томас Малтус "An Essay on the Principle of Population" е повлиял много на Чарлс Дарвин и Алфред Ръсел Уолъс и тяхното независимо достигане до концепцията за естествения отбор. В него Малтус набляга на наблюдението, че ограничените природни ресурси са в конфликт с евентуалното експоненциално увеличаване  на  раждаемостта (респ. нарастване на популациите) и води до неизбежна борба за оцеляване между индивидите. Дарвин, както сам отбелязва в своята автобиография, взема предвид тези основни разсъждения при формирането на идеята си за естествения отбор:
През октомври 1838г., петнадесет години след като започнах проучването си върху систематиката, започнах да чета, по-скоро за развлечение, статията на Малтус за популациите. И въпреки че бях добре подготвен по отношение на "борбата за оцеляване", която може да бъде забелязана навсякъде при по-продължително наблюдение на поведението при животни и растения, изведнъж ме осени идеята, че поради тези именно причини благоприятните вариации ще бъдат съхранявани, а неблагоприятните - унищожавани. Резултатът от всичко това може да бъде формиране на нов вид. Така аз имах най-сетне теория, върху която да работя.


Взаимодействието между демографските и еволюционни процеси е ключово за разбирането на основната идея на Дарвин: че експоненциалното нарастване в крайна сметка ще доведе до голяма популация и в резултат на ограничените ресурси на средата ще се появи борба между индивидите и поле за действие за естествения отбор да "отсява" онези наследствени вариации, които предлагат по-добра адаптивност. В резултат на това ние можем да интерпретираме еволюционната история на повечето видове на базата на тези два основни елемента: гените и условията на средата. Както добре знаем, в повечето случаи условията на средата оказват натиск, на който гените отговарят. При хората обаче ситуацията става много по-сложна, когато се появява още един основен елемент: културата. Посочената статия на Richerson, Boyd и Bettinger (2009) предлага една гледна точка върху този неясен въпрос, чрез проследяването на демографските и еволюционни процеси в отделни времеви периоди:
Идеята за времева скала се използва при изучаването на физическите условия на средата, за опростяване на проблемите при сложните взаимодействия между отделни процеси. Ако един процес се извършва в краткосрочен период от време, а друг в дългосрочен период от време, тогава може да се предположи, че първият процес съчетава факторите (а при по-сложни ситуации може да се опише и статистически), които управляват втория процес. Когато краткосрочните и дългосрочните процеси се застъпват (взаимодействат) можем да предположим, че на всеки времеви отрязък от еволюцията на дългосрочния процес отговаря краткосрочен процес.
Проблемът се появява, когато се фокусираме върху внезапното стартиране на културната еволюция: възможно ли е да се направи подобно разделяне във времето на демографските и еволюционни процеси? От данните, с които разполагаме до момента, изглежда, че през по-голямата част от историята на човека се наблюдава изоставане във времето. Например, периодът Acheulean продължава около милион години, но дори през Холоцен първите общности се появяват 5000 години след произхода на селското стопанство. Но, както отбелязват изследователите, по време на модерната индустриална революция големите промени по отношение на културата се случват в същия период от време, когато прирастът на населението се увеличава. Наблюдава се, че понякога дори културните промени настъпват много по-бързо, отколкото промяната в прираста. От това може да се направи извод, че най-важният фактор, определящ времевата скала на едно хилядолетие са нововъведенията, иновациите, а не нарастването на числеността на популацията:
По този начин класическото дарвинистко схващане за контрол над популациите играе изключително важна роля, но в краткосрочен период от време. Борбата за оцеляване съществува и тук. Еволюцията се проявява като адаптивните иновации в дългосрочен план увеличават благоприятното влияние на средата за въпросните популации. Например, ние не очакваме систематични доказателства за нарастване на популациите непосредствено преди появата на значителни иновации. Нарастването на популациите очевидно е резултат от иновациите, не обратното, във времевите периоди, които обикновено разглеждаме при археологически проучвания.
Richerson и др. използват тези връзки между демография и иновации, за да разграничат три периода в историята на човека: късен Плейстоцен, Холоцен и съвременност. Периодът, върху който ще се фокусираме, е Плейстоцен. По това време хоминиди с достатъчно голям мозък са съществували в Африка и Западна Евразия почти от около 150 000 години, със сравнително бавни темпове на техническо развитие. Тогава, непосредствено след последният ледников период, преди 50 000 години, започва забележителна модернизация - макар и ограничена в определени географски региони. Известни са сложни предмети и оръдия на труда в Африка и от преди това, но тези напредъци в културно отношение винаги са последвани от отстъпление. За да се опитат да обяснят това, Richerson и др. питат следното:
Какво е лимитирало прогреса в останалите периоди от нашата еволюция? Били ли са условията на средата водещи в селектирането на по-голям мозък и по-изтънчени умения?
Едно възможно решение предлага генетиката: въпреки големия мозък на нашите предци просто са им липсвали познавателни умения. Все пак знаем, че размерът на мозъка не винаги отговаря на познанието. То може да се появи с разликите в развитието, невроанатомичната организация, гирификацията и цитоархитектурата на мозъчната кора. В транскрибционния процес, например - при кодиращите гени, като egr1, социалната информация може да доведе до промени в генната експресия в мозъка, мозъчните функции и социалното поведение на индивида. Гените също така определят социалното поведение на индивидите като повлияват мозъчното развитие и физиология. Най-често даваният пример в това отношение е  foxp2: той е в основата на много вградени модели социално поведение, като проучванията сочат, че човешкият му аналог е претърпял последна модификация преди около 44 000 години. Това съответства на предположението на учени като Ричард Клайн, според който тази промяна се е случила преди около 50 000 години.

Като оставим това настрана, Richerson и др. определят условията на околната среда като основен лимитиращ фактор на културните промени през Плейстоцен. По-конкретно авторите разглеждат честосрещани високоамплитудни климатични промени, известни като цикли на Dansgaard-Oeschger.
Видимото зачестяване на Dansgaard-Oeschger циклите с времето може да е движеща сила за развитието на човешките култури през последните 250 000 години. Много интензивните Dansgaard-Oeschger цикли преди около 60 000 години са възможно обяснение за разселването на съвременните хора от Африка и началото на етап 4 (виж Acheulean) в изработването на инструменти в Западна Евразия. Но защо студените, сухи и променливи условия на средата са благоприятствали появата на културна изтънченост при хората?
Първо, може да се предположи, че променливите и сурови условия на средата по-рядко са възпрепятствали и по-често са благоприятствали човешките популации. Нашият вид е имал уникалната способност да променя средата си, да я експлоатира, много по-успешно от останалите хищници. Тази конкуренция с големите хищници може да обясни защо хората са се намирали на такова ниско ниво на развитие преди 50 000 години: дори със задоволителното си ниво на техническото си развитие хората са били неспособни да се конкурират с големите животни, специално адаптирани за ловуване. Можем да направим сравнение с днешните леопарди и диви кучета: конкуренцията с по-големите хищници, като лъвовете, принуждава тези по-дребни животни да напуснат земите, изобилстващи от най-разнообразна плячка. В резултат популациите на гепардите и на дивите кучета се характеризират със сравнително по-ниска численост, което предполага ниско ниво на генетично разнообразие - обща черта с нас, хората.

За разлика от гепардите и дивите кучета една от причините, поради които хората са били способни да преодолеят ниската численост на популациите си и да напуснат тясната ниша, която заемат е, че нашите културни и поведенчески предимства са ни позволили да "управляваме" тези сложни условия на средата:
Хората вероятно са следвали много по-лесно постоянно променящия се видов състав на своите жертви, за разлика от конкурентните им хищници (лъвове, кучета, вълци, хиени). Хората могат да забележат и разберат динамичните, сезонни промени, в които популациите на тревопасните животни са извън равновесие и да се възползват от тях преди конкурентните им хищници да установят тази промяна в екосистемата.
Социалната организация и изработката на оръжия са също начини за редуциране на конкуренцията. А залавянето на хищниците - възможен начин да се намали влиянието им. Като цяло авторите посочват три ситуации, в които хората правят адаптивни решения на предизвикателствата, които динамичният ледников период им предлага: 1) В етап 3 (виж Acheulean) в изработката на инструменти хората са били способни да ловуват тревопасни животни, при това сравнително успешно, въпреки конкуренцията с други хищници; 2) Повишената сложност в социалната организация може да преодолее нарастващата несигурност, която е присъща за шумна среда. По-големите и плътни човешки популации на Западна Европа  от Горен Палеолит вероятно са открили по-добро решение на проблема със сигурността при храненето, което е убягвало на хората от Среден Палеолит; 3) Възможност да поддържат културна еволюционна система, в резултат на зачестилите хилядолетни мащабни промени.

Въз основа на това Richerson и др. създават сценарий, според който преди 50 000 години човешките популации са поддържали ниска численост, което вероятно се дължало на конкуренцията с други хищници. За хората още едно следствие от ниската численост е т.нар. тасманийски ефект - когато технологичният напредък може да бъде с по-голяма вероятност изгубен в малки популации. Когато зачестяват Dangaard-Oeschger циклите, културното развитие дава на хората адаптивно предимство в условия, от които техните конкуренти не са били способни да се възползват. Все пак, взаимнозаменяемите етап 3 и етап 4 в технологичното развитие на различни места и в различни моменти от историческото развитие са се влияели от променливите условия. Когато тези условия са били благоприятни, човешките популации са достигали численост, която им е позволявала да поддържат определено ниво на сложност. Но както авторите отбелязват:
Ако средата е досатъчно бедна откъм ресурси за достатъчно дълъг период от време, една популация, достигнала сложност от Горен Палеолит, може да пострада от тасманийски ефект и да претърпи загуба на сложност и да се върне назад до ниво на развитие от Среден Палеолит. Този вид промяна е наричан понякога хистерезис. Вместо да реагира директно на промяната в условията на средата, популацията ще има силната тенденция да остане или малка, или голяма. Като се има предвид достатъчно голямото и трайно нарастване на допустимото натоварване, популацията ще се насочи към по-високо равновесно състояние, където може да се запази и при влошаване на условията на средата, при които високото равновесие може да се поддържа, но не може да бъде достигнато от популации, които се намират на по-ниско равновесно състояние. Забавянето във времето ще се отрази в културната област. Сложните технологични елементи няма да се появят или изчезнат веднага.
Richerson и др. насочват и към друг процес, който може би е допринесъл за палимпсестното смесване на етап 3 и етап 4 в изработката на инструменти в Африка. Достигайки най-високи и най-големи нива на сложност, хората вероятно са се превърнали в съвършени ловци. Това е довело до намаляването на популациите на жертвите, което от своя страна принуждава човешките популации да се свият, а това от своя страна може да доведе до връщането на степента на сложност от ниво 4 до ниво 3. Това впоследствие позволява на популациите на жертвите да възстановят своята численост. Счита се, че през Горен Палеолит човешките популации в Западна Евразия са били сравнително способни да поддържат ниво 4 за по-дълъг период от време. Едно от обясненията за това е тяхното географско положение - били са локализирани в частта на палеостепен биом (обитаван от мамутите), разположена близо до морето.
И неандерталците, и съвременните хора са живеели в централен Сибир поне по време на благоприятните междуледникови периоди, но никога не проникват в беринговия регион. Недостигът на дърва за огрев в планините на Верхоянск, западна граница на Берингия, представлява непреодолима пречка за заселването на човека там, поне до чувствителното затопляне на климата. Големите бозайници обаче са се нуждаели от гъста козина, не от огън, за защита от студа и вероятно са преминали бързо верхоянската бариера. Този регион се превръща в един своеобразен резерват за мамутите.
Човешките популации в близост до тези природни резервати са се намирали на по-високо ниво, защото те не са намалявали числеността на мамутите и другите едри животни - тяхна плячка. Това може да се сравни с Африка, Югоизточна Азия и Австралия, които се характеризират с по-топъл климат и липсата на естествени убежища за големите тревопасни. Изглежда това поставя Западна Евразия в уникална ситуация в този момент от историята, където човешките популации са понесли огромно допустимо натоварване, а впоследствие са получили способност да поддържат ниво 4 на технологично развитие. Разбира се, има и алтернативни обяснения на това, защо човешките популации са били в състояние да поддържат високи нива на сложност по време на особено неблагоприятните условия на циклите Dansgaard-Oeschger. Едно такова обяснение е например схващането, че завишената честота на тези цикли, довежда до по-голямата честота на срещане на тези гени в човешката популация, които позволяват по-високо ниво на културно развитие.

Максимайлният брой на иновациите не е задължително да зависи от гъстотата или числеността на популацията. Richerson и др. обръщат внимание на лимитиращите фактори, включително и възможността за отлагане на социалните иновации, забавящи скоростта на техническия прогрес. Коеволюцията на гените и културата е друга особеност, при която необходимостта от голяма генетична промяна се оказва пречка за по-високо културно развитие. А какво да кажем за възможността иновациите да се появяват на тласъци. Което ще означава, ако големите технически революции са в основата на промяната, че приемането на плавната поява на иновациите е погрешно. Последната им точка, а вероятно и най-важната, е твърдението, че броят на индивидите вероятно не е основният фактор, водещ до тасманийски ефект. По-скоро това е съотношението между млади и стари индивиди в популацията.
Caspari и Lee (2006) използват оценка на степента на дентално износване на фосилни находки, за да определят грубо съотношението между млади и стари индивиди в популациите, като започват от австралопитеците и стигат до Горен Палеолит. Забелязва се много леко отклонение от нормата в отделните таксони, с едно голямо изключение: популациите от Горен Палеолит са със съотношение на старите към младите индивиди около 2.1, докато европейските неандерталци имат коефициент 0.35. В Югозападна Азия, където неандерталците и съвременните хора са съжителствали, денталните находки показват, че и двете популации са имали коефициент 1. Caspari и Lee считат, че култерната, а не генетичната промяна, е отговорна за тази разлика. Промените са реципрочни по отношение на това, че по-възрастните индивиди е възможно да са събирали и предавали културни умения по-често отколкото младите и е възможно да са натрупвали по-индивидуално получените знания.
Всички тези фактори са потенциално очевидни. Но както авторите посочват:
Нашите цели са ограничени. Ние не можем да представим пълен преглед на цялата литература по палеодемография, палеоекология и палеоантропология. Даваме си сметка, че много от елементите в нашия сценарий се базират на спорни доказателства, дори предположения. Надяваме се да се изясни връзката между демографските и културните еволюционни процеси, за да можем да формулираме по-добре хипотезите за някои озадачаващи аспекти от палеоантропологичните находки.
Цитати от: Richerson PJ, Boyd R, & Bettinger RL (2009). Cultural innovations and demographic change. Human biology; an international record of research, 81 (2-3), 211-35 PMID: 19943744

понеделник, 4 октомври 2010 г.

Henry Wadsworth Longfellow

I shot an arrow into the air,
It fell to earth, I knew not where;
For so swiftly it flew, the sight
Could not follow it in its flight.

I breathed a song into the air,
It fell to earth, I knew not where;
For, who has sight so keen and strong
That it can follow the flight of song?

Long, long afterward, in an oak
I found the arrow, still unbroke;
And the song, from beginning to end,
I found again in the heart of a friend...

Конвергентна еволюция: Торбести и Плацентни бозайници


Торбестите в Австралия и плацентните бозайници в северното полукълбо представляват пример за конвергентна еволюция. Тези два подкласа бозайници са се адаптирали в хода на еволюцията по идентичен начин към определени хранителни навици, начин на придвижване и климатични условия. Двете групи се отделят от общ предшественик преди около 90млн. години. Молекулярни изследвания показват, че нито един от съвременните разреди торбести бозайници не е на повече от 65млн. години, а всички те са наследници на торбестите, които заселват Гондвана след К/Т периода. Въпреки че почти цялата последвала еволюция на торбестите протича в южното полукълбо, те почти сигурно са възникнали първо в северните континенти. Пълната липса на южноамерикански фосили на кредни торбести показва, че те са мигрирали от Северна в Южна Америка в края на Креда.

Разположение на континентите през К/Т периода.


    Преди 200млн. години Австралия е била част от Гондвана, която е включвала още Африка, Мадагаскар, Нова Зеландия, Антарктида и Южна Америка. Когато Гондвана се разделя, Австралия остава изолирана от останалата суша в продължение на следващите 100млн. години. Торбестите навлизат в Австралия преди това разделяне и от там нататък започва тяхната независима еволюция. Един единствен фосил на зъб, от плацентен бозайник, намерен в Австралия, показва, че и двете групи – плацентни и торбести – се разпространяват на южния континент, но само торбестите оцеляват. Това означава, че торбестите конкурират успешно плацентните в Австралия. Нещо, което не се наблюдава никъде другаде.

     Днес в Австралия живеят около 200 вида торбести и много малко плацентни. Торбестите развиват многобройни адаптации и заемат разнообразните ниши в Австралия, също както плацентните в северното полукълбо.


Ето няколко примера:  


Sminthopsis leucopus

Apodemus agrarius


Торбестите мишки, също като плацентните в северното полукълбо, са дребни, изключително пъргави катерачи, обитаващи нискиа растителност. Живеят под земята и нощем излизат, за да събират храна. Двете групи имат сходен външен вид и специализации.


Talpa europaea
 

Торбестите къртици подобно на плацентните къртици в северното полукълбо живеят под земята, ровейки тунели в меката почва в търсене на насекоми. Обтекаемата форма на тялото и приспособените за копаене предни крайници са адаптации за подземен начин на живот. Кадифената козина улеснява придвижването сред почвата. Цветът на козината е бял до оранжев при торбестите и сив до черен при плацентните къртици. 

Vombatus ursinus
Marmota monax


  Вомбатите наподобяват северноамериканските мармоти. Притежават подобни на гризачите зъби, с които изгризват корени и други части на растенията, с които се хранят. И двете групи изравят дупки в земята.
 
Macrotis lagotis


Lepus europaeus


Бандикутите са сходни със зайците. Притежават добре развити задни крайници, които определят характерният им начин на придвижване - с подскоци. Дългите уши показват важната роля на слуха. Бандикутите имат разнообразна диета - насекоми и растения, докато зайците са изключителни вегетарианци.  

Thylacinus cynocephalus

Canis lupus


Тасманийският вълк, обитавал някога Австралия и о.Тасмания, отговаря на плацентните вълци в северното полукълбо. Крайниците им са адаптирани за бягане, а челюстите и зъбите - пригодени за хищнически начин на живот.

Марсупиалните и плацентни бозайници на Австралия и северното полукълбо са пример за това, което наричаме конвергентна еволюция - животни, които не са близки в родствено отношение, могат да развият сходни черти, благодарение на това, че заемат идентични екологични ниши в отделните континенти.

неделя, 3 октомври 2010 г.

Бозайниците през Палеоцен (част седма).

Carnivora, Creodonta и месоядни унгулати: Бозайниците стават хищници.


В ранната си история бозайниците са били основно в ролята на жертви на големите хищници, предимно динозаври. Всъщност известни са само няколко мезозойски бозайници, които е възможно да се определят като хищници, но нито един от тях не е ловувал едра плячка.

След драматичния К/Т обрат бозайниците се озовават в коренно различна ситуация. Има много малко сведения от ранен Палеоцен за сухоземни хищници. Сухоземните крокодили, змиите и големите гущери преминават К/Т границата и са потенциални хищници. Разбира се и речните крокодили също са се възползвали от възможността да уловят някой непредпазлив бозайник по време на водопой. Но така или иначе хищническият натик от страна на влечугите е бил в огромна степен редуциран на сушата. Големи нелетящи птици са намирани в къснопалеоценски скали в някои части на света, като Gastornis в Европа, и е възможно те също да са ловували бозайници. Такива обаче напълно липсват от иначе богатите палеоценски фосилни находки на С.Америка. Известната Diatryma се появява там в началото на Еоцен. Данните за останалите птици са твърде ограничени. Най-ранните представители на нощните грабливи птици, които ловуват бозайници, са Ogygoptynx и Berruornis от късен Палеоцен на САЩ и Франция съответно.


Нелетящи птици от р.Diatryma, защитаващи малките си от хищните Pachyaena
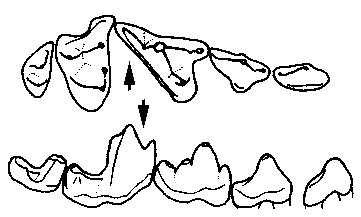
От друга страна бозайниците през ранен Палеоцен са били, почти без изключения, с размери не по-големи от тези на днешен плъх. А зъбите им все още не показват специализации за срязване на месо. Първите известни месоядни бозайници не са така впечатляващи. Примитивните видове са се хранили с насекоми и има много плавно и не така ясно преминаване от насекомоядните, които се хранят с малки безгръбначни към малките хищници. В Ю.Америка това е довело до еволюцията на на хищните торбести, като борхиените. Две големи групи плацентни бозайници осъществяват този преход през Палеоцен – изчезналите креодонти (разред Creodonta) и истинските хищници (разред Carnivora), които процъфтяват и днес. Вероятен предшественик и на двете групи са палеориктидите от късна Креда до ранен Терциер, така че възможно е двата разреда да са близкородствени. Креодонтите и истинските хищници се различават от примитивните си насекомоядни предшественици по наличието на специализирана двойка горни и долни дъвкателни зъби, действащи като ножици при срязването на месото. Членовете на Carnivora са имали само една такава двойка зъби, които винаги са последният горен предкътник и първият долен кътник. При креодонтите често се срещат повече от една двойка такива зъби, които винаги са формирани от кътниците. Членовете и на двата разреда притежават големи кучешки зъби за залавяне и убиване на плячката.
Дъвкателни зъби на Protictis  

Истинските хищници от разред Carnivora се появяват за първи път в средата или дори в началото на Палеоцен в С.Америка. Те формират важно звено в много от палеоценските съобщества на континента. Членовете на Carnivora са дребни, специализирани хищници през Палеоцен и през по-голямата част на Еоцен, сравними по екология с днешните белки и цивети. Повечето от палеоценските форми принадлежат към сем. Viverravidae, примитивна група със само една по-значителна специализация – загубата на техните последни кътници. Тъй като при котките и техните родтвени групи също липсват последните кътници, виверавидите понякога са определяни като техни предшественици. Protictis е типичен виверавид от Палеоцен. Характерните зъби са напълно развити, но показват също така, че насекомите все още са сътавлявали част от менюто на тези животни. Фосилни находки на мозъчна кутия показват, че зрението и слухът са имали огромно значение  за този ранен хищник. Но позицията на орбитите при ранните карнивори показва, че триизмерното им зрение все още е било слаборазвито в сравнение с това на днешните хищници. Наличните скелетни останки от Protictis показват, че животните са обитавали горите. Второ семейство специализирани хищници – Miacidae – се появява с Uintacyon в късен Палеоцен. Тази група процъфтява в началото на Еоцен и включва видове, които са еднакво приспособени за живот по дърветата и по земята.

По-едрите креодонти се появяват за първи път през късен Палеоцен. Те бързо стават доминиращи хищни бозайници в началото на Терциер по целия свят с изключение на Ю.Америка, Австралия и вероятно Антарктика. Първите креодонти са членове на сем. Oxyaenidae от късен Палеоцен на С.Америка. Оксиенидите могат да бъдат сравнени с котките или белките от днешните хищници. Били са животни с дълго тяло, къси крайници и много дълга опашка. Оксиенидите са стъпвали предимно на цяло стъпало, не на пръсти като съвременните хищници, които са приспособени към бързо бягане. Големият подобен на котка Oxyaena е добре представен през ранен Еоцен. Родствените къснопалеоценски видове са по-дребни и с по-слабо развити дъвкателни зъби. Те са класифицирани към р.Oxyaena от някои автори, но други ги поставят в р.Dipsalidictis. Независимо от класификацията си, тези животни са били специализирани хищници, хранещи се с птици, дребни бозайници, яйца и все пак някои насекоми, подобно на днешните цивети. Структурата на техните крайници показва, че вероятно са се катерили по дърветата.
Реконструкция на Oxyaena


Къснопалеоценските Dipsalodon и къснопалеоценските до ранноеоценски Palaeonictis ни представят едно различно адаптивно направление при оксиенидите. Масивните им челюсти и груби зъби са по-характерни за строшаване на кости, отколкото за срязване на месо. Това са характерни черти на мършоядни животни. Най-едрият от тези видове е бил Palaeonictis peloria от късен Палеоцен на Уайоминг. Намерените останки са непълна челюст, която вероятно е била около 20см. на дължина. Това животно е било най-едрият хищник в своята екосистема.

Втора група креодонти са много успешните хиенодонтиди, подобни на кучета или хиени хищници с доказани възможности за бягане. Дълго време те бяха известни само от еоценски и по-късни находки, с изключение на няколко спорни елемента. Внезапното появяване на хиенодонтидите в началото на Еоцен (заедно с още няколко групи бозайници) е възможно да се дължи на  имиграция от част на света с недостатъчни фосилни находки от Палеоцен. Например Африка, която е местообитание на хиенодонтидите в по-късни времена, но достатъчно доказателства все още липсват. Най-старите безстпорни фосили на хиенодонтиди неотдавна бяха открити в къснопалеоценски пластове на Монголското плато. Те включват примитивни видове като Prolimnocyon - малък хищник, познат ни от ранноеоценски пластове.

Както видяхме нито карниворите, нито креодонтите развиват големи месоядни видове преди края на Палеоцен. Тази екологична ниша не е била освободена преди това. Била е частично запълнена от много различна група, която ние днес трудно асоциираме с едрите хищници: унгулатите или копитни бозайници.

Примитивните унгулати са обединени донякъде изкуствено в разреда Condylarthra. Кондилартите формират основната група, от която вероятно са произлезли всички копитни бозайници. Най-ранните кондиларти са били дребни всеядни животни, които вероятно са се хранили с фина растителност, сочни плодове и някои насекоми. Много от потомците им стават все по-растителноядни, но една група кондиларти, арктоционидите, се придържат към всеядна диета, а в един момент дори преминават към месоядна. Въпреки това арктоционидите никога не са били специализирани хищници. Предполага се, че те периодично са включвали месо в диетата си, обикновено в периодите на растеж. В средата на Палеоцен арктоционидите достигат размери на вълк или дребна мечка, като Arctocyon в Европа и Claenodon в С.Америка. Анатомията им е изключително примитивна, били са доста тромави животни, с къси и здрави крайници и изключително дълга опашка. Определено не са били пригодени за бягане след плячка, а техните масивни пропорции, остри нокти и големи кучешки зъби не са били достатъчни за справянето с по-дребна плячка  при изненадващи атаки. Дъвкателните зъби на Arctocyon и Claenodon са били широки и плоски, много по-различни от тези на специализираните хищни бозайници, но подобни на тези на мечките. Това показва, че подобно на тези големи днешни всеядни бозайници, Arctocyon и Claenodon са се хранили предимно с плодове, ядки, семена и насекоми.
Череп на Arctocyon primaevus

Трябва да се отбележи, че някои арктоциониди започват да развиват саблевидни зъби, които са най-характерни за саблезъбите котки, но се развиват независимо и при други бозайници, като например при саблезъбите торбести Thylacosmilus. Сред арктоционидите тази черта първо се забелязва при Mentoclaenodon от среден Палеоцен в Германия. С дължина на черепа от около 15см. тези редки животни са най-едрите бозайници в местната фауна. Mentoclaenodon притежават сравнително големи горни кучешки зъби, които са извити назад и се забелязват наченки на разширяване на брадичката, което обикновено се асоциира със саблевидни зъби. При арктоционидът Anacodon (късен палеоцен до ранен Еоцен на С.Америка) брадичката развива голям ръб, който предпазва големите горни кучешки зъби. Тези арктоциониди вероятно са първите хищни животни, които развиват подбна зъбна редица.

Разред Mesonychia развиват много по-пълно характерните за хищниците черти, отколкото арктоционидите. Палеоценските представители принадлежат основно към семействата Triisodontidae и Mesonychidae. Трисодонтидите представляват сляпо разклонение, включващо животни с масивни челюсти и много здрави дъвкателни зъби. В С.Америка те са били сред най-едрите бозайници на ранен Палеоцен: точно след К/Т границата, когато повечето останали бозайници са с размерите на плъх, трисодонтидът Econodon се е отличавал с големите си размери. Среднопалеоценският му родственик Triisodon надминава всеки арктоционид по размери. Заедно с арктоционидите, трисодонтидите са сътавлявали основната група хищници в ранните бозайникови съобщества.Andrewsarchus от среден Еоцен на Азия е известен като гигантският последен оцелял трисодонтид. Със своите 84см. дължина на черепа той носи прозвището „най-големият хищен бозайник на всички времена”, макар да е бил по-скоро всеяден.

От всички унгулати мезонихидите включват може би най-приспособените сухоземни хищници. Могат да бъдат сравнени с днешните кучета, хиени или мечки. Техните основни оръжия за нападение на плячка са били големите им заострени кучешки зъби, типична черта за хищен бозайник. За разлика от останалите хищници, мезонихидите не са притежавали остри нокти за разкъсване на плячката. Техните крайници развиват по-скоро издайническите черти на техните предци унгулатите, които са малко необичайни за хищници: копита. Дъвкателните зъби на мезонихидите са били приспособени за срязване на месо, но механизмът е бил доста по-различен (и очевидно по-малко ефективен) от този на истинските хищници, креодонтите и хищните торбести. Всъщност възможно е мезонихидите да са използвали зъбите си за откъсване на месо от жертвата с помощта на движение на главата, докато крайниците задържат плячката.
Мезонихидите вероятно възникват в Азия, където един от най-примитивните им представители, Yangtanlestes, е известен от раннопалеоценски пластове. Били са доста разпространени в Азия, където присъстват в почти всички палеоценски съобщества. Тъй като истинските хищници, креодонтите и кондилартите са били рядкосрещани или напълно отсъстващи от тези съобщества, мезонихидите доминират нишата на хищници през Палеоцен в Азия. Два рода мезонихиди, Dissacus и Ancalagon, успешно се разселват на други континенти в средата на Палеоцен. Dissacus е хищник с размерите на койот, разпространен в цялото северно полукълбо. Ancalagon от среден Палеоцен на Ню Мексико е бил много по-едър, със череп сравним по размери с този на кафява мечка. Като повечето архаични животни мезонихидите са имали сравнително големи глави, така че тялото на Ancalagon е било с по-малки размери от тези на днешните хищници. Ранните мезонихиди имат по пет пръста на крайниците си, което показва, че вероятно са стъпвали на цяло стъпало при ходене. По-късните мезонихиди са били много по-добре адаптирани за бягане. Пример в това отношение е къснопалеоценският до еоценски род Pchyaena, мезонихид с размерите на вълк или малка мечка. Подобно на приспособените за бягане членове на чифтокопитните унгулати, Pchyaena са стъпвали на пръсти, чийто брой е бил редуциран до четири и са завършвали с копита. Тази анатомия показва, че тези мезонихиди са били по-приспособени за издържливост, отколкото за скорост при бягането. По-дребните видове на Pchyaena вероятно са били по-хищни, а по-едрите – всеядни. Зъбната редица на Pchyaena не показва приспособления за строшаване на кости, което е характерно за по-късните мезонихиди, адаптирани за хранене с мърша.

Преминаването от палеоценски хищнически характеристики към днешните, характерни за истинските хищници, става бавно, стъпка по стъпка и съвсем не синхронизирано в отделните части на света. Архаичните форми като арктоционидите и трисодонтидите изчезват малко след Палеоцен. Последните мезонихиди оцеляват до Олигоцен в Азия. Тяхното изчезване може би се дължи на конкуренцията с креодонтите и истинските хищници. Креодонтите са доминиращите хищници през Еоцен. Но те бързо отстъпват позиции след появата на все повече истински хищници в края на Еоцен и последните креодонти изчезват в края на Миоцен. Съществуват предположения, че креодонтите са по-нисши от истинските хищници в анатомично и интелектуално отношение, но фосилните находки не представят доказателства за това. Така че остава загадка защо тази толкова многобройна и разпространена група от хищници изчезва и само една група месоядни бозайници остава на сушата – Carnivora.

Въпреки че едно разклонение на архаичните хищници може би е оцеляло до днешни дни и в океаните – китовете. Молекулярните биолози ги причисляват основно към чифтокопитните, но много палеонтолози смятат, че техни предшественици са мезонихидите. Едни от най-примитивните китове от ранен Еоцен (от находки в Азия) показват много сходства с мезонихидите. Така че можем да предположим, че една популация от рибоядни мезонихиди, населяваща бреговете на Азия, са се приспособили за живот във океана, формирайки разклонение, довело до най-големите бозайници живели някога.

Едно проучване обаче на ранните китове от 2001г. показва с много по-голяма сигурност, че тези животни все пак са родствени на чифтокопитните. При това положение една от най-забележителните конвергентни еволюции трябва да е тази между мезонихидите и ранните китове.

вторник, 28 септември 2010 г.

В училищата се учи, не се вярва, господа вярващи!


Преди няколко дена в София се проведе "мирно" литийно шествие, организирано от БПЦ, която призова да се въведе вероучението като задължителен предмет в училище. Т.е. "мирно" настроени граждани и институция (в лицето на Църквата) пожелаха да наложат насилствено изучаването в училищата на нещо, което трябва да е право на личен избор.
Аргументът им? Ами както винаги - моралът. Но без да се усетят лицемерните попове направиха огромна грешка. Заявявайки, че вярата в бог ще направи децата по-морални, те недвусмислено заявиха, че ние, които не вярваме в богове, сме... по-неморалните. Е, това ли ще е моралът, на който ще се възпитават децата ни в училищата от въпросните богослови: "Вижте деца, тези от вас, които повярват в нашия бог, веднага стават една категория по-горе от онези там гадни атеистчета, че и от друговерците"?!
Много голям гаф, за който лично аз съм благодарна на изкукалите богослови. По този отблъскващ начин те показаха най-красноречиво, че там, където моралните принципи не еволюират, всъщност морал няма.

Този "аргумент с морала" от страна на Църквата всъщност показва и още нещо - как насадената до степен на фанатичност вяра в кратуните на хората може да ги лиши от способност да защитават идеите си, да се аргументират и въобще да мислят. Защото така, както те се опитват да наложат методите си на възпитание на всички, по същия начин и ние атеистите можем да направим нещо аналогично - вярата е вредна, тя парализира детските мозъчета и трябва да бъде забранено да се изповядва. Какво толкова, това пък са нашите принципи, защо да не опитаме да ги наложим като задължителни? Защо след като Църквата може безнаказано да се намеси в светските дела и ние, гражданите, да не можем да се намесим в нейните, верските? С какво толкова е по-специална тя?

Няма смисъл да се обяснява и това, че моралът всъщност няма нищо общо с каквито и да е Писания, че деца не се възпитават със страх от бог, защото те не са магарета, които да вкараш в пътя с камшик... Достатъчно е, че при предоставилата им се възможност да се изложат и да станат за смях и отвращение, поповете се справиха повече от блестящо. Амин! :)))

Бозайниците през Палеоцен (шеста част).

Кондилартите - древните копитни бозайници.


Филогения на Condylarthra.


Разредът Condylarthra е една от най-характерните групи бозайници за палеоцена. И илюстрира добре еволюционното ниво на фауната през този период. В сравнение с днешните бозайници кондилартите са сравнително неспециализирани плацентни бозайници. Но в сравнение със своите насекомоядни предшественици, те показват първи признаци на всеядство и дори на растителноядство. Заради отсъствието на сушата на едри растителноядни след изчезването на динозаврите, тази особеност в диетата дава началото на бързата еволюция и разпространение на кондилартите, което се наблюдава през Палеоцен. В резултат на това се появяват различни групи унгулати (или копитни бозайници), които формират доминиращата растителноядна фауна в повечето неозойски животински съобщества на сушата, с изключение на островния континент Австралия. Терминът „унгулати” произхожда от наименованието на подгрупа плацентни бозайници (Ungulata), които са потомци на същия предшественик – най-примитивния кондиларт. От съвременните бозайници, чифтокопитни и нечифтокопитни, дамани, слонове, тръбозъби, морски крави и китове се причисляват към надразред Ungulata (виж края на статията). Освен кондилартите още няколко изчезнали групи би следвало да се причислят към унгулатите, особено ендемичните южноамерикански разреди. Въпреки че много от членовете на групата имат копита, тази особеност не характеризира групата като цяло. Някои кондиларти наистина имат малки копитца, но повечето примитивни видове са с нокти. От друга страна, копита са притежавали животни, които не могат да бъдат причислени към Ungulata, като изчезналите Pantodonta.

Повечето кондиларти са познати от Северна Америка, континентът с най-богати фосилни находки на палеоценски бозайници. Само няколко палеоценски фауни са открити в Европа, но находките показват голямото значение на кондилартите и в тази част на света, а представителите им са били близкородствени на северноамериканските кондиларти. Изненадващо само два все още спорни  вида кондиларти са описани от иначе богатата палеоценска фауна на Азия. Екологичната роля на растителноядни бозайници там е заета от Anagalida и Pantodonta. Същите са ставали жертва на месоядните потомци на кондилартите, разред Mesonychia. Южна Америка е единственият континент в южното полукълбо, който има съществени находки на палеоценски бозайници, а нарастващият брой южноамерикански кондиларти ги прави важен компонент на фауната.

Най-примитивният известен кондиларт е плъхоподобният Protoungulatum, намерен в С.Америка и Канада. Освен разположението на останките му в много ранни пластове, животни от този род са намирани и заедно със зъби на динозаври. По тази причина първоначално се е смятало, че Protoungulatum са се срещали през късна Креда, съществували са заедно с последните динозаври и типичните кредни бозайници в т.нар. съобщества от Бъгкрийк. При това положение ранните унгулати като Protoungulatum трябва да са били в конкуренция с растителноядните динозаври и вероятно са допринесли за изчезването им. По-съвременната интерпретация представя находките от Бъгкрийк като смесени раннопалеоценски и къснокредни фосили. Къснокредните вероятно са ерозирали и отнесени от реката, а впоследствие отложени върху пресни раннопалеоценски пластове. Решението не е окончателно, но новата интерпретация отговаря на идеята, че бозайниците са запълнили освободените екологични ниши след катастрофичното изчезване на динозаврите, което може би е причинено от сблъсък на голям метеорит. Но така или иначе прецизното датиране на фосилите и статуса на Protoungulatum като прототип на по-късните унгулати не е оспорван откакто са първоначално описани през 1965г. Макар и примитивни, в зъбната редица на Protoungulatum се наблюдават сходства с типичните черти, наблюдавани при унгулатите: ниски зъби със способност за надробяване и смилане, което вероятно е позволявало на животните да се хранят с по-фина растителност, плодове, но и някои насекоми. Само няколко кости са намерени от тези най-ранни кондиларти, освен техни челюсти и зъби. Голям прогрес е, че потенциален предшественик на Protoungulatum е бил идентифициран в къснокредни пластове в Узбекистан. Тези малки плацентни бозайници, наречени целестиди, не са окончателно класифицирани като унгулати, но зъбите им показват първите етапи от еволюцията на унгулатоподобна зъбна редица.

Protoungulatum традиционно се смятат за членове на сем. Arctocyonidae, което се развива и достига разцвет през Палеоцен в С.Америка и Европа. Арктоционидите са най-малката група растителноядни кондиларти. Всъщност техните скелети са изглеждали до голяма степен като тези на месоядните, с големи и сравнително остри кучешки зъби, но арктоционидите не са притежавали специализирани зъби за разрязване на месото и е по-вероятно да са били всеядни. Крайниците им са били относително къси и не показват нито една от специализациите, които обикновено свързваме с унгулатите, като редукция на крайните пръсти, срастване на костите или наличие на копита. Повечето арктоциониди са познати единствено от техните зъби, които показват много индивидуални вариации, така че систематиката на различните родове арктоциониди е незавършена в момента.

Реконструкция на Chriacus.
Със телесно тегло от 5 до 10 кг. Chriacus е типичен пример за малък арктоционид. Почти пълен скелет е открит в ранноеоценски пластове в Уайоминг. Той е наистина примитивен по структура и подобен на раннопалеоценските арктоциониди като Loxolophus, които са малко по-добре изучени. Както показва този скелет, Chriacus е бил еднакво пригоден за живот по дърветата и на земята. От съвременните животни може да бъде най-добре оприличен на ракуните и циветите. Както повечето катерещи се животни Chriacus притежава мощна мускулатура на крайниците, много подвижни стави и пригодени за хващане на храна петопръсти предни крайници. Опашката на Chriacus е дълга и груба, използвана е за балансиране, възможно е да е била снабдена и с хватателна част. Както показва формата на предните крайници, животните са били приспособени за копаене. Chriacus вероятно са се хранили с плодове, насекоми и други дребни животни. Интересно е, че горните им резци са образували нещо като гребло, което вероятно е използвано за дълбаене.

Можем да предположим, че едрите арктоциониди, като Arctocyon и Claenodon, въпреки че също са били способни да се катерят по дърветата, са прекарвали по-голямата част от живота си на земята. Екологично тези животни могат да се сравнят с мечките. Възможно е периодично да са заемали ролята на едри хищници в палеоценската фауна, заедно с други две семейства унгулати, еволюирали от ранните арктоциониди – трисодонтидите и мезонихидите. Последните две групи са класифицирани също и като кондиларти, но сега се считат за членове на разред Mesonychia. Всички тези месоядни унгулати се разглеждат като отделно звено на ранните хищни бозайници.

Освен арктоционидите, членовете на сем. Periptychidae са били доминиращите кондиларти в раннопалеоценската фауна на С.Америка. По-малко от 1 млн. години след края на Креда те вече са развили разнообразни размери, от катерицоподбните Anisonchus, до Ectoconus с размерите на овца, един от най-едрите бозайници на Пуеркан. Пълен скелет на Ectoconus ditrigonus бе открит в Ню Мексико, правещ този вид най-добре изучения бозайник от фауната на Пуеркан. Една от лакътните стави на скелета е увредена, което вероятно означава, че животното е било куцо. Общата телесна структура на Ectoconus е подобна в много отношения на тази на едрите арктоциониди – като масивна конструкция, малка мозъчна кутия на черепа, силни и къси крайници и дълга силна опашка. Петте широкоразположени пръсти на крайниците им са имали малки копитца, подобни на тези на днешните тапири, за разлика от  завършващите с нокти пръсти на арктоционидите. Въпреки че Ectoconus почти идеално се доближават по форма на тялото до унгулатите, зъбната редица на периптихидите е специализирана по особен начин, който ги изключва като възможни предшественици на съвременните унгулати. Повечето периптихиди имат уголемени, широки предкътници, които вероятно са служили за справяне с груба растителна храна. Силни бразди се спускат от върховете на тези зъби, намерени в последният оцелял род къснопалеоценския Periptychus, животно малко по-дребно от Ectoconus, но с по-голяма глава. Характерните предкътници на Periptychus са много подобни на тези на някои прасета и всъщност тези животни са имали диета много сходна с тази на прасетата или пекаритата.

Реконструкция на Ectoconus.
Трето семейство от кондиларти – Hyopsodontidae – добива значение в късен Палеоцен, когато периптихидите вече са минали зенита на своята еволюция. Хиопсодонтидите са били типични дребни животинки, имащи много малко общо с представата ни за унгулатите и са приличали повече на насекомоядните по външен вид. В някои случаи сходството с насекомоядните включва и такива детайли като зъбите и съществуват предположения, че някои хиопсодонтиди, като Litomylus, са всъщност насекомоядни, родствени на таралежите. Най-добре проученият хиопсодонтид е Hyopsodus, много успешен род, срещал се е в ранен Еоцен в цялото северно полукълбо и е един от последните кондиларти – разбира се, това е и въпрос на дефиниране на групата. Няколко фосилни находки от С.Америка показват, че Hyopsodus за първи път се появява там през късен Палеоцен. Hyopsodus е дребно животно, с размерите на плъх, с къси крайници, завършващи с нокти. Скелетът му показва, че животното е живеело частично и върху дърветата. Европейското подсемейство на хиопсодонтидите е от къснопалеоценския период на Германия и Франция. Родът Pacshatherium вероятно е бил многоброен през късен Палеоцен и ранен Еоцен в Европа, тъй като на места съставлява значителна част от бозайниковите фосили. Глезенните кости на тези животни показват, че Pacshatherium вероятно са били пъргави по дърветата, сравними с днешните катерици.

Реконструкция на Hyopsodus.
Mioclaenus и други техни родственици от Палеоцена на С.Америка дълго време са считани като друго подсемейство на хиопсодонтидите. Днес те се разглеждат като отделно семейство на кондилартите - Mioclaenidae. Миокленидите са били малко по-едри от хиопсодонтидите – с размерите на заек. Уголемените и широки предкътници са типични и за миокленидите, също както при периптихидите. Те вероятно са подпомагали преработката на твърда, фиброзна растителност. Среднопалеоценският род Mioclaenus притежава най-уголемените предкътници.

Не са известни миоклениди от Европа, а Pleuraspidotherium от късния Палеоцен на Франция вероятно погрешно е включен в това семейство. Pleuraspidotherium, животно с дължина на тялото около 60см., е един от най-често срещаните бозайници в речните наноси около Церн. Pleuraspidotherium е притежавал изумително развити дъвкателни зъби за палеоценски бозайник, сходни с тези при някои съвременни чифтокопитни, като елените и камилите. Снабдени с подобна зъбна редица, Pleuraspidotherium вероятно са били най-успешните растителноядни животни за времето си. Скелетът им е сходен с този на арктоционидите, но без адаптациите за катерене по дърветата на последните.

Череп на Pleuraspidotherium aumonieri.
Дълго време фосили на миоклениди са били намирани само в северното полукълбо, но нови открития напоследък показват, че тези кондиларти са колонизирали и Ю.Америка, при това доста успешно. До сега в Ю.Америка са открити само миоклениди от ранен Палеоцен, като Molinodus и Tiuclaenus, локализирани в Тиупампа, Боливия.

Едно ендемично за Ю.Америка семейство кондиларти, Didolodontidae, е от по-късен период. Дидолодонтидите и миокленидите имат много сходни зъбни редици, което подсказва, че дидолодонтидите са еволюирали от миокленидите в Ю.Америка. За съжаление фосилните находки от дидолодонтиди са недостатъчни, като зъби, челюсти и отделни глезенни кости. Били са предимно дребни животинки, като Ernestokokenia от късен Палеоцен до ранен Еоцен в Аржентина, но са включвали и по-едри видове като среднопалеоценските Lamegoia от Бразилия. По отношение на зъбната си редица дидолодонтидите са почти неразличими от най-примитивните представители на Litopterna, важен разред ендемични южноамерикански унгулати, от които по-късно произлизат конеподобните и камилоподобни форми. Важна разлика с дидолодонтидите е наличието при литоптерните на по-развити крайници, особено в областта на глезена. Тези промени вероятно са свързани с подскачащият начин на придвижване на ранните литоптерни, което позволява на по-късните видове да се приспособят към бързо бягане. Свидетелствата от зъбната редица показват недвусмислено, че също както и дидолодонтидите, литоптерните произлизат от миокленидите. За да се представи по-точно тази роднинска връзка, наскоро бе предложено да се отдели нов разред бозайници – Panameriungulata – за миокленидите, дидолодонтидите и литоптерните. Това би било подходящо място и за систематизиране на примитивни форми с неустановена глезенна структура, които не могат със сигурност да се определят като дидолодонтиди или литоптерни, като Asmithwoodwardia, много дребно животинче от среден Палеоцен на Бразилия и ранен Еоцен на Аржентина.

Обратно в северното полукълбо, друго семейство кондиларти, Phenacodontidae, вероятно включва предшествениците на един много по-познат разред унгулати – нечифтокопитните Perissodactyla, представени от конете, носорозите и тапирите в днешната фауна. Исторически фенакодонтидите формират „ядрото” на Condylarthra. Намерени са добре запазени скелети на рода Phenacodus, който е добър пример за прародител-унгулат с начални адаптации за бързо бягане. За разлика от арктоционидите, периптихидите и миокленидите, фенакодонтидите не са част от първата вълна кондиларти, населили С.Америка. Те са представени на този континент първо с подобните на лисица по размери Tetraclaenodon в средата на Палеоцен. Наличието на по-напреднали фенакодонтиди като Phenacodus и Ectocion бележат началото на късен Палеоцен в С.Америка. Родът Phenacodus включва разнообразни по размери фенакодонтиди, включително и животни с размери подобни на днешните овце. Членовете на род Ectocion обикновено са по-малки, с телесно тегло от само три килограма при най-дребните видове, като се наблюдава известно застъпване в това отношение между двата рода. Фенакодонтидите са били доминиращите бозайници в С.Америка през късен Палеоцен и са съставлявали повече от 50% от видовете в тогавашната фауна на континента. Phenacodus и Ectocion съществуват до средата на Еоцен, като към края на Палеоцен числеността на фенакодонтидите намалява. Интересно изключение представлява локалното изобилие на фенакодонтидът с размерите на куче – Meniscotherium, който на места е формирал истинско струпване на фосили. Meniscotherium е датиран основно като ранноеоценски, въпреки че най-ранните представители вероятно са съществували още в края на Палеоцен. Phenacodus се разпространяват в Европа в началото на Еоцен по времето на голям фаунистичен обмен между Новия и Стария свят, но никога не става така съществен компонент на европейската фауна.

Реконструкция на Phenacodus.
Скелетите на фенакодонтидите са твърде примитивни, особено по отношение на дългата и тежка опашка, но някои сходства с перисодактилите се наблюдават при Phenacodus: крайниците му са по-дълги, отколкото при по-примитивните кондиларти и завършват с пет пръста с копита, като първият и петият пръст са с редуцирана дължина. Това предшества същата особеност при ранноеоценските коне Hyracotherium (понякога наричани „Eohippus”), които пък напълно са загубили първия пръст на предния си крайник, и първия и последния пръст на задния. Това устройство показва, че Phenacodus до голяма степен са били добре приспособени за бягане. Известни са само няколко останки на крайници от Ectocion, но те показват, че тези дребни животни са били в известна степен по-добри бегачи от по-едрите си родственици. Черепът на фенакодонтидите е удължен и с малка мозъчна кутия. При Phenacodus intermedius назалните кости са удължени като при днешните тапири, което показва, че тези животни са притежавали къс хобот. От зъбната редица може да се съди, че по-късните фенакодонтиди са били растителноядни: техните дъвкателни зъби са имали малки вдлъбнатини, които понякога са се сливали в ръбове, подобно на зъбите на ранните перисодактили като Hyracotherium. При Meniscotherium тези гънки образуват полулунна форма, което донякъде изглежда като преждевременно развита адаптация за раннотерциерски бозайник, която може да бъде сравнена само със зъбната редица на Pleuraspidotherium. Ранните изследвания ги определят като родствени групи, но по-късни проучвания показват, че не съществува такава връзка между Pleuraspidotherium и Meniscotherium, а последният е всъщност най-високоспециализираният фенакодонтид.

По-ранни изследвания показаха, че разред Condylarthra включва форми, които са били адаптирани към разнообразни условия на живот, като катерицоподобни, катерещи се по дърветата животни, растителноядни с размерите на днешни овце и големи подобни на мечки всеядни. Въпреки че всички кондиларти имат общ предшественик, близък до Protungulatum, те са обединени от систематиката предимно въз основа на това, че са по-примитивни в сравнение с по-развитите унгулати. Поради тази причина разредът често е критикуван като „кошче за боклук” за примитивните форми унгулати и е предложено отхвърлянето му. Няколко други разреда са били предложени да включат членовете на Condylarthra, най-вече Panameriungulata за разклонението, което води до южноамериканските литоптерни, но досега няма постигнат консенсус по този въпрос.

От друга страна трябва да отбележим, че ролята на кондилартите като предшественици на унгулатите, не е напълно документирана и подкрепена от достатъчно фосили. Може да се каже, че в този случай търсенето на „липсващо междинно звено” продължава. Litopterna е група от унгулати, които с по-голяма сигурност могат да се прибавят към друга, по-специфична група кондиларти, миокленидите. Случаят със сходноадаптираните, нечифтокопитни унгулати, или Perissodactyla, в северното полукълбо е по-неясен. В случай, че се докаже, че те наистина са еволюирали от фенакодонтидите, то тогава трябва да бъдат отделени от по-примитивните форми като Tetraclaenodon, но междинни форми все още не са открити. Интересен череп с впечатляващи перисодактилни зъби наскоро беше открит в Китай в къснопалеоценски пластове и именуван Radinskya. Въпреки че не са открити останки от крайници на Radinskya, това животно представлява правдоподобен вариант за произхода на нечифтокопитните унгулати. Родствените връзки на Radinskya с останалите палеоценски бозайници не са съвсем ясни, но е възможно да принадлежи към ендемичното азиатско семейство растителноядни, наречени Phenacolophidae.

Молекулярните изследвания поставят под въпрос традиционните схващания. Молекулярните биолози вече преместиха слоновете, даманите, тръбозъбите и морските крави от Ungulata в нова група – Afrotheria, африканско разклонение плацентни бозайници, което включва още тенреците, златните къртици и слонските земеровки. Ако това бъде потвърдено и от бъдещи изследвания, съвременните унгулати, тези съществуващи и днес наследници на Condylarthra, ще бъдат ограничени до нечифтокопитните, чифтокопитните и китовете.

Съвременните изследвания на части от скелета на друг кондиларт показват, как едно изненадващо откритие може да възроди идеи, които са били отхвърлени. Съдейки по зъбите, екземплярът от срадния Палеоцен на Ню Мексико представлява малък арктоционид, подобен на Chriacus. Освен адаптациите за катерене по дърветата, характерни и за Chriacus, фрагментите от крайници на новия екземпляр показват начални адаптации и за бягане, удивително сходни с тези при ранните представители на чифтокопитните унгулати Artiodactyla. Това представлява ново доказателство в подкрепа на хипотезата, първоначално базирана на факти от зъбните редици, че Artiodactyla са потомци на арктоционидите. В същото време това изненадващо откритие показва, че палеоценските бозайници са били много по-разнообразни в адаптациите си, отколкото техните зъби и челюсти могат да ни покажат.